
01.11.2019
Вторичная структура белковой молекулы имеет вид. Вторичная структура белка
Название «белки» происходит от способности многих из них при нагревании становиться белыми. Название «протеины» происходит от греческого слова «первый», что указывает на их важное значение в организме. Чем выше уровень организации живых существ, тем разнообразнее состав белков.
Белки образуются из аминокислот, которые соединяются между собой ковалентной – пептидной связью: между карбоксильной группой одной аминокислоты и аминогруппой другой. При взаимодействии двух аминокислот образуется дипептид (из остатков двух аминокислот, от греч. пептос – сваренный). Замена, исключение или перестановка аминокислот в полипептидной цепи вызывает возникновение новых белков. Например, при замене лишь одной аминокислоты (глутамина на валин) возникает тяжелая болезнь – серповидно-клеточная анемия, когда эритроциты имеют другую форму и не могут выполнять свои основные функции (перенос кислорода). При образовании пептидной связи отщепляется молекула воды. В зависимости от количества аминокислотных остатков выделяют:
– олигопептиды (ди-, три-, тетрапептиды и т. п.) – содержат до 20 аминокислотных остатков;
– полипептиды – от 20 до 50 аминокислотных остатков;
– белки – свыше 50, иногда тысячи аминокислотных остатков
По физико-химическим свойствам различают белки гидрофильные и гидрофобные.
Существуют четыре уровня организации белковой молекулы – равноценные пространственные структуры (конфигурации , конформации ) белков: первичная, вторичная, третичная и четвертичная.
Первичная структура белков является простейшей. Имеет вид полипептидной цепи, где аминокислоты связаны между собой прочной пептидной связью. Определяется качественным и количественным составом аминокислот и их последовательностью.
Вторичная структура белков
Вторичная структура образована преимущественно водородными связями, которые образовались между атомами водорода NH-группы одного завитка спирали и кислорода СО-группы другого и направлены вдоль спирали или между параллельными складками молекулы белка. Белковая молекула частично или целиком скручена в α-спираль или образует β-складчатую структуру. Например, белки кератина образуют α-спираль. Они входят в состав копыт, рогов, волос, перьев, ногтей, когтей. β-складчатую имеют белки, которые входят в состав шелка. Извне спирали остаются аминокислотные радикалы (R-группы). Водородные связи значительно более слабые, чем ковалентные, но при значительном их количестве образуют довольно прочную структуру.
Функционирование в виде закрученной спирали характерно для некоторых фибриллярных белков – миозин, актин, фибриноген, коллаген и т. п.
Третичная структура белка
Третичная структура белка. Эта структура постоянна и своеобразна для каждого белка. Она определяется размером, полярностью R-групп, формой и последовательностью аминокислотных остатков. Полипептидная спираль закручивается и укладывается определенным образом. Формирование третичной структуры белка приводит к образованию особой конфигурации белка – глобулы (от лат. globulus – шарик). Его образование обуславливается разными типами нековалентных взаимодействий: гидрофобные, водородные, ионные. Между остатками аминокислоты цистеина возникают дисульфидные мостики.
Гидрофобные связи – это слабые связи между неполярными боковыми цепями, которые возникают в результате взаимного отталкивания молекул растворителя. При этом белок скручивается так, что гидрофобные боковые цепи погружены вглубь молекулы и защищают ее от взаимодействия с водой, а снаружи расположены боковые гидрофильные цепи.
Третичную структуру имеет большинство белков – глобулины, альбумины и т. п.
Четвертичная структура белка
Четвертичная структура белка. Образуется в результате объединения отдельных полипептидных цепей. В совокупности они составляют функциональную единицу. Типы связей разные: гидрофобные, водородные, электростатические, ионные.
Электростатические связи возникают между электроотрицательными и электроположительными радикалами аминокислотных остатков.
Для одних белков характерно глобулярное размещение субъединиц – это глобулярные белки. Глобулярные белки легко растворяются в воде или растворах солей. К глобулярным белкам принадлежит свыше 1000 известных ферментов. К глобулярным белкам относятся некоторые гормоны, антитела, транспортные белки. Например, сложная молекула гемоглобина (белка эритроцита крови) является глобулярным белком и состоит из четырех макромолекул глобинов: двух α-цепей и двух β-цепей, каждая из которых соединена с гемом, содержащим железо.
Для других белков характерно объединение в спиральные структуры – это фибриллярные (от лат. fibrilla – волоконце) белки. Несколько (от 3 до 7) α–спиралей свиваются вместе, подобно волокнам в кабеле. Фибриллярные белки нерастворимы в воде.
Белки делят на простые и сложные.
Простые белки (протеины)
Простые белки (протеины) состоят только из остатков аминокислот. К простым белкам относят глобулины, альбумины, глутелины, проламины, протамины, пистоны. Альбумины (например, альбумин сыворотки крови) растворимы в воде, глобулины (например, антитела) нерастворимы в воде, но растворимы в водных растворах некоторых солей (хлорид натрия и т. п.).
Сложные белки (протеиды)
Сложные белки (протеиды) включают в состав, кроме остатков аминокислот, соединения другой природы, которые называются простетическою группой. Например, металлопротеиды – это белки, содержащие негеминовое железо или связанные атомами металлов (большинство ферментов), нуклеопротеиды – белки, соединенные с нуклеиновыми кислотами (хромосомы и т. п.), фосфопротеиды –белки, в состав которых входят остатки фосфорной кислоты (белки яичного желтка и т. п.), гликопротеиды –белки в соединении с углеводами (некоторые гормоны, антитела и т. п.), хромопротеиды – белки, содержащий пигменты (миоглобин и т. п.), липопротеиды – белки, содержащие липиды (входят в состав мембран).
Регулярные вторичные структуры белка
Вторичные структуры отличаются регулярной, периодической формой (конформацией) главной цепи, при разнообразии конформаций боковых групп.
Вторичная структура РНК
Примерами вторичной структуры могут служить стебель-петля и псевдоузел
Вторичные структуры в мРНК служат для регуляции трансляции. Например, вставка в белки необычных аминокислот , селенометионина и пирролизина , зависит от стебля-петли, расположенной в 3" нетранслируемой области. Псевдоузлы служат для программированного изменения рамки считывания генов.
См. также
- Четвертичная структура
Примечания
Wikimedia Foundation . 2010 .
Смотреть что такое "Вторичная структура белков" в других словарях:
Вторичная структура конформационное расположение главной цепи (англ. backbone) макромолекулы (например, полипептидная цепь белка), независимо от конформации боковых цепей или отношения к другим сегментам . В описании вторичной… … Википедия
вторичная структура белка - – пространственная конфигурация полипептидной цепи, формируемая в результате нековалентных взаимодействий между функциональными группами аминокислотных остатков (α и β структуры белков) … Краткий словарь биохимических терминов
Разные способы изображения трёхмерной структуры белка на примере фермента триозофосфатизомеразы. Слева «палочковая» модель, с изображением всех атомов и связей между ними; цветами показаны элементы. В середине изображены структурные мотивы … Википедия
Шпилечная структура - * шпількавая структура * hairpin structure or stemand loop s. вторичная структура в молекуле нуклеиновой кислоты, в которой комплементарные последовательности в пределах одной и той же нити соединяются, образуя двунитчатый стебель, в то время как … Генетика. Энциклопедический словарь
Белка структура - основными структурными единицами (мономерами) белков являются остатки аминокислот, соединенные друг с другом пептидными связями в длинные цепи. Отдельные цепи могут притягиваться друг к другу или образовывать петли и загибаться назад, так что… … Начала современного естествознания
Полимер - (Polymer) Определение полимера, виды полимеризации, синтетические полимеры Информация об определении полимера, виды полимеризации, синтетические полимеры Содержание Содержание Определение Историческая справка Наука о Полимеризация Виды… … Энциклопедия инвестора
- (биополимеры) природные макромолекулы, играющие осн. роль в биол. процессах. К П. б. относятся белки, нуклеиновые кислоты (НК) и полисахариды. П. б. образуют структурную основу всех живых организмов; все процессы в клетке связаны с… … Физическая энциклопедия
У этого термина существуют и другие значения, см. Белки (значения). Белки (протеины, полипептиды) высокомолекулярные органические вещества, состоящие из соединённых в цепочку пептидной связью альфа аминокислот. В живых организмах… … Википедия
Белки - одни из важных органических элементов любой живой клетки организма. Они выполняют множество функций: опорную, сигнальную, ферментативную, транспортную, структурную, рецепторную и т. д. Важным эволюционным приспособлением стали первичная, вторичная, третичная и четвертичная структуры белков. Из чего состоят эти молекулы? Почему так важна правильная конформация протеинов в клетках организма?
Структурные компоненты белков
Мономерами любой полипептидной цепи являются аминокислоты (АК). Эти низкомолекулярные органические соединения достаточно распространены в природе и могут существовать как самостоятельные молекулы, выполняющие свойственные им функции. Среди них транспорт веществ, рецепция, ингибирование или активация ферментов.
Всего насчитывается около 200 биогенных аминокислот, однако только 20 из них могут быть Они легко растворяются в воде, имеют кристаллическую структуру и многие из них сладкие на вкус.
С химической точки зрения АК - это молекулы, в составе которых обязательно присутствуют две функциональные группы: -СООН и -NH2. С помощью этих групп аминокислоты образуют цепочки, соединяясь друг с другом пептидной связью.
Каждая из 20 протеиногенных аминокислот имеет свой радикал, в зависимости от которого разнятся химические свойства. По составу таких радикалов все АК классифицируются на несколько групп.
- Неполярные: изолейцин, глицин, лейцин, валин, пролин, аланин.
- Полярные и незаряженные: треонин, метионин, цистеин, серин, глутамин, аспарагин.
- Ароматические: тирозин, фенилаланин, триптофан.
- Полярные и заряженные отрицательно: глутамат, аспартат.
- Полярные и заряженные положительно: аргинин, гистидин, лизин.
Любой уровень организации структуры белка (первичный, вторичный, третичный, четвертичный) в основе имеет полипептидную цепь, состоящую из АК. Разница лишь в том, как эта последовательность складывается в пространстве и с помощью каких химических связей такая конформация поддерживается.
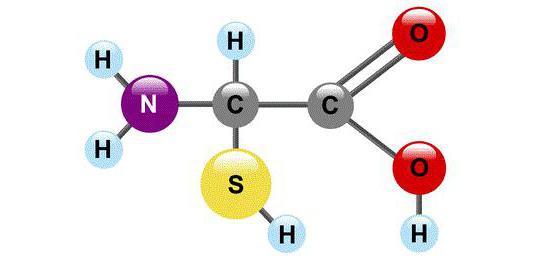
Первичная структура белка
Любой протеин образуется на рибосомах - немембранных органеллах клетки, которые участвуют в синтезе полипептидной цепочки. Здесь аминокислоты соединяются друг с другом с помощью прочной пептидной связи, образуя первичную структуру. Однако такая первичная структура белка от четвертичной крайне отличается, поэтому необходимо дальнейшее созревание молекулы.
Такие белки, как эластин, гистоны, глутатион, уже с такой простейшей структурой способны выполнять свои функции в организме. Для подавляющего же числа протеинов следующим этапом становится образование более сложной вторичной конформации.

Вторичная структура белка
Образование пептидных связей - это первый этап созревания большинства белков. Чтобы они могли выполнять свои функции, их локальная конформация должна претерпеть некоторые изменения. Достигается это с помощью водородных связей - непрочных, но в то же время многочисленных соединений между основным и кислотным центрами молекул аминокислот.
Так формируется вторичная структура белка, от четвертичной отличающаяся простотой комплектации и локальной конформацией. Последнее означает, что не вся цепь подвергается преобразованию. Водородные связи могут образовываться на нескольких участках разной отдаленности друг от друга, причем их форма также зависит от типа аминокислот и способа комплектации.
Лизоцим и пепсин - это представители белков, имеющих вторичную структуру. Пепсин участвует в процессах пищеварения, а лизоцим выполняет защитную функцию в организме, разрушая клеточные стенки бактерий.
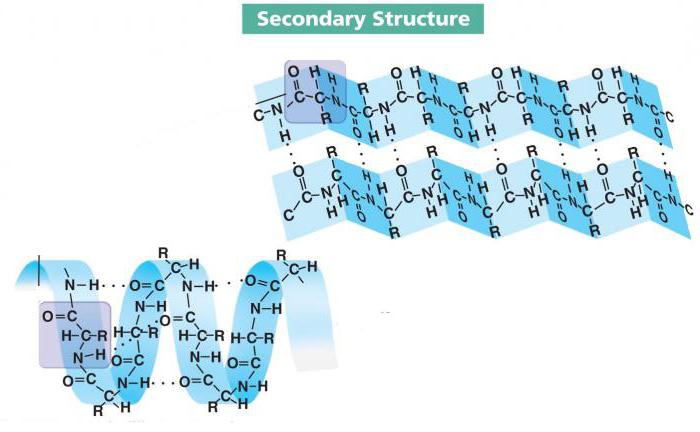
Особенности вторичной структуры
Локальные конформации пептидной цепи могут отличаться друг от друга. Их уже изучено несколько десятков, и три из них являются наиболее распространенными. Среди них альфа-спираль, бета-слои и бета-поворот.
- Альфа-спираль - одна из часто встречающихся конформаций вторичной структуры большинства белков. Представляет собой жесткий стержневой каркас с ходом в 0,54 нм. Радикалы аминокислот направлены наружу.
Наиболее распространены правозакрученные спирали, и иногда можно найти левозакрученные аналоги. Формообразующую функцию выполняют водородные связи, которые стабилизируют завитки. Цепь, которая образует альфа-спираль, содержит очень мало пролина и полярных заряженных аминокислот.
- Бета-поворот выделяют в отдельную конформацию, хотя это можно назвать частью бета-слоя. Суть заключается в изгибе пептидной цепочки, который поддерживается водородными связями. Обычно само место изгиба состоит из 4-5 аминокислот, среди которых обязательно наличие пролина. Эта АК единственная имеет жесткий и короткий скелет, что позволяет образовать сам поворот.
- Бета-слой представляет собой цепочку аминокислот, которая образует несколько изгибов и стабилизирует их водородными связями. Такая конформация очень напоминает сложенный в гармошку лист бумаги. Чаще всего такую форму имеют агрессивные белки, однако встречается немало исключений.
Различают параллельный и антипараллельный бета-слой. В первом случае С- и N- концы в местах изгиба и на концах цепи совпадают, а во втором случае нет.
Третичная структура
Дальнейшая упаковка белка приводит к формированию третичной структуры. Стабилизируется такая конформация с помощью водородных, дисульфидных, гидрофобных и ионных связей. Их большое количество позволяет скрутить вторичную структуру в более сложную форму и стабилизировать ее.
Разделяют глобулярные и Молекула глобулярных пептидов представляет собой шаровидную структуру. Примеры: альбумин, глобулин, гистоны в третичной структуре.
Формируют прочные тяжи, длина которых превышает их ширину. Такие протеины чаще всего выполняют структурную и формообразующую функции. Примерами служат фиброин, кератин, коллаген, эластин.

Структура белков в четвертичной структуре молекулы
Если несколько глобул объединяются в один комплекс, формируется так называемая четвертичная структура. Такая конформация характерна не для всех пептидов, и она образуется при необходимости выполнения важных и специфических функций.
Каждая глобула в составе представляет собой отдельный домен или протомер. В совокупности молекулы называется олигомером.
Обычно такой белок имеет несколько устойчивых конформаций, которые постоянно сменяют друг друга либо в зависимости от воздействия каких-либо внешних факторов, либо при необходимости выполнения разных функций.
Важным отличием третичной структуры белка от четвертичной являются межмолекулярные связи, которые и отвечают за соединение нескольких глобул. В центре всей молекулы часто располагается ион металла, который напрямую влияет на образование межмолекулярных связей.
Дополнительные структуры белка
Не всегда цепочки аминокислот достаточно для выполнения функций белка. В большинстве случаев к таким молекулам присоединяются другие вещества органической и неорганической природы. Т. к. эта особенность характерна для подавляющего числа ферментов, состав сложных протеидов принято делить на три части:
- Апофермент - это белковая часть молекулы, представляющая собой аминокислотную последовательность.
- Кофермент - не белковая, но органическая часть. В ее состав могут входить различные типы липидов, углеводов или даже нуклеиновых кислот. Сюда относятся и представители биологически активных соединений, среди которых встречаются витамины.
- Кофактор - неорганическая часть, представленная в подавляющем большинстве случаев ионами металлов.
Структура белков в четвертичной структуре молекулы требует участия нескольких молекул разного происхождения, поэтому многие ферменты имеют сразу три составляющие. Примером служит фосфокиназа - фермент, обеспечивающий перенос фосфатной группы от молекулы АТФ.
Где образуется четвертичная структура молекулы белка?
Полипептидная цепь начинает синтезироваться на рибосомах клетки, однако дальнейшее созревание протеина происходит уже в других органеллах. Новообразованная молекула должна попасть в транспортную систему, которая состоит из ядерной мембраны, ЭПС, аппарата Гольджи и лизосом.
Усложнение пространственного строения белка происходит в эндоплазматической сети, где не только формируются различные виды связей (водородные, дисульфидные, гидрофобные, межмолекулярные, ионные), но и присоединяются кофермент и кофактор. Так образуется четвертичная структура белка.
Когда молекула полностью готова к работе, она попадает либо в цитоплазму клетки, либо в аппарат Гольджи. В последнем случае эти пептиды упаковываются в лизосомы и транспортируются к другим компартментам клетки.
Примеры олигомерных белков
Четвертичная структура - это структура белков, которая призвана способствовать выполнению жизненно важных функций в живом организме. Сложная конформация органических молекул позволяет, прежде всего, влиять на работу многих метаболических процессов (ферменты).
Биологически важными белками являются гемоглобин, хлорофилл и гемоцианин. Порфириновое кольцо является основой этих молекул, в центре которых - ион металла.
Гемоглобин
Четвертичная структура молекулы белка гемоглобина представляет собой 4 глобулы, соединенных межмолекулярными связями. В центре - порфин с ионом двухвалентного железа. Белок переносится в цитоплазме эритроцитов, где занимают около 80 % всего объема цитоплазмы.
Основой молекулы является гем, который имеет больше неорганическую природу и окрашен в красный цвет. Также это распада гемоглобина в печени.
Все мы знаем, что гемоглобин выполняет важную транспортную функцию - перенос кислорода и углекислого газа по организму человека. Сложная конформация молекулы белка формирует специальные активные центры, которые и способны связывать соответствующие газы с гемоглобином.
Когда образуется комплекс "белок-газ", формируются так называемые оксигемоглобин и карбогемоглобин. Однако есть еще одна разновидность таких объединений, которая достаточно устойчива: карбоксигемоглобин. Представляет собой комплекс из белка и угарного газа, устойчивость которого объясняет приступы удушья при чрезмерной токсикации.
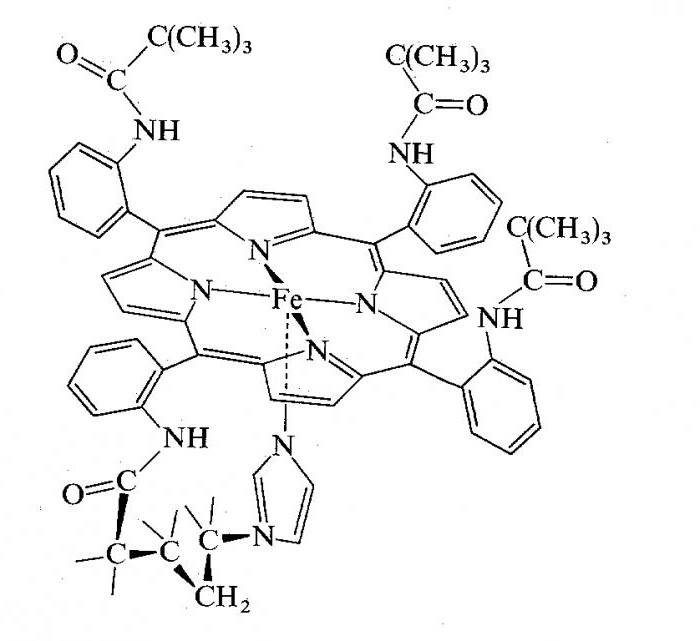
Хлорофилл
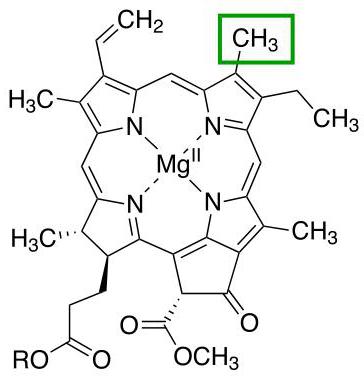
Еще один представитель белков с четвертичной структурой, связи доменов которого поддерживает уже ион магния. Главная функция всей молекулы - участие в процессах фотосинтеза у растений.
Существуют различные типы хлорофиллов, которые отличаются друг от друга радикалами порфиринового кольца. Каждая из этих разновидностей отмечается отдельной буквой латинского алфавита. Например, для наземных растений характерно наличие хлорофилла а или хлорофилла b, а у водорослей встречаются и другие типы этого белка.
Гемоцианин
Эта молекула - аналог гемоглобина у многих низших животных (членистоногие, моллюски и т. д.). Основным отличием структуры белка с четвертичной структурой молекулы является наличие иона цинка вместо иона железа. Гемоцианин имеет голубоватый цвет.
Иногда люди задаются вопросом о том, что было бы, если заменить гемоглобин человека гемоцианином. В таком случае нарушается привычное содержание веществ в крови, а в частности аминокислот. Также гемоцианин нестабильно образует комплекс с углекислым газом, поэтому «голубая кровь» имела бы склонность к образованию тромбов.
Выделяют четыре уровня структурной организации белков: первичный, вторичный, третичный и четвертичный. Каждый уровень имеет свои особенности.
Первичной структурой белков называется линейная полипептидная цепь из аминокислот, соединенных между собой пептидными связями. Первичная структура - простейший уровень структурной организации белковой молекулы. Высокую стабильность ей придают ковалентные пептидные связи между α-аминогруппой одной аминокислоты и α-карбоксильной группой другой аминокислоты [показать] .
Если в образовании пептидной связи участвует иминогруппа пролина или гидроксипролина, то она имеет другой вид [показать] .

При образовании пептидных связей в клетках сначала активируется карбоксильная группа одной аминокислоты, а затем она соединяется с аминогруппой другой. Примерно так же проводят лабораторный синтез полипептидов.
Пептидная связь является повторяющимся фрагментом полипептидной цепи. Она имеет ряд особенностей, которые влияют не только на форму первичной структуры, но и на высшие уровни организации полипептидной цепи:


- копланарность - все атомы, входящие в пептидную группу, находятся в одной плоскости;
- способность существовать в двух резонансных формах (кето- или енольной форме);
- транс-положение заместителей по отношению к С-N-связи;
- способность к образованию водородных связей, причем каждая из пептидных групп может образовывать две водородные связи с другими группами, в том числе и пептидными.
Исключение составляют пептидные группы с участием аминогруппы пролина или гидроксипролина. Они способны образовывать только одну водородную связь (см. выше). Это сказывается на формировании вторичной структуры белка. Полипептидная цепь на участке, где находится пролин или гидроксипролин, легко изгибается, так как не удерживается, как обычно, второй водородной связью.
Номенклатура пептидов и полипептидов . Название пептидов складывается из названий входящих в них аминокислот. Две аминокислоты дают дипептид, три - трипептид, четыре - тетрапептид и т. д. Каждый пептид или полипептидная цепь любой длины имеет N-концевую аминокислоту, содержащую свободную аминогруппу, и С-концевую аминокислоту, содержащую свободную карбоксильную группу. Называя полипептиды, перечисляют последовательно все аминокислоты, начиная с N-концевой, заменяя в их названиях, кроме С-концевой, суффикс -ин на -ил (так как аминокислоты в пептидах имеют уже не карбоксильную группу, а карбонильную). Например, название изображенного на рис. 1 трипептида - лейцил фенилаланил треонин .
Особенности первичной структуры белка . В остове полипептидной цепи чередуются жесткие структуры (плоские пептидные группы) с относительно подвижными участками (-СНR), которые способны вращаться вокруг связей. Такие особенности строения полипептидной цепи влияют на укладку ее в пространстве.
Вторичная структура представляет собой способ укладки полипептидной цепи в упорядоченную структуру благодаря образованию водородных связей между пептидными группами одной цепи или смежными полипептидными цепями. По конфигурации вторичные структуры делятся на спиральные (α-спираль) и слоисто-складчатые (β-структура и кросс-β-форма).


α-Спираль . Это разновидность вторичной структуры белка, имеющая вид регулярной спирали, образующейся благодаря межпептидным водородным связям в пределах одной полипептидной цепи. Модель строения α-спирали (рис. 2), учитывающая все свойства пептидной связи, была предложена Полингом и Кори. Основные особенности α-спирали:
- спиральная конфигурация полипептидной цепи, имеющая винтовую симметрию;
- образование водородных связей между пептидными группами каждого первого и четвертого аминокислотных остатков;
- регулярность витков спирали;
- равнозначность всех аминокислотных остатков в α-спирали независимо от строения их боковых радикалов;
- боковые радикалы аминокислот не участвуют в образовании α-спирали.
Внешне α-спираль похожа на слегка растянутую спираль электрической плитки. Регулярность водородных связей между первой и четвертой пептидными группами определяет и регулярность витков полипептидной цепи. Высота одного витка, или шаг α-спирали, равна 0,54 нм; в него входит 3,6 аминокислотных остатка, т. е. каждый аминокислотный остаток перемещается вдоль оси (высота одного аминокислотного остатка) на 0,15 нм (0,54:3,6 = 0,15 нм), что и позволяет говорить о равнозначности всех аминокислотных остатков в α-спирали. Период регулярности α-спирали равен 5 виткам или 18 аминокислотным остаткам; длина одного периода составляет 2,7 нм. Рис. 3. Модель а-спирали Полинга-Кори
β-Структура . Это разновидность вторичной структуры, которая имеет слабо изогнутую конфигурацию полипептидной цепи и формируется с помощью межпептидных водородных связей в пределах отдельных участков одной полипептидной цепи или смежных полипептидных цепей. Ее называют также слоисто-складчатой структурой. Имеются разновидности β-структур. Ограниченные слоистые участки, образуемые одной полипептидной цепью белка, называют кросс-β-формой (короткая β-структура). Водородные связи в кросс-β-форме образуются между пептидными группами петель полипептидной цепи. Другой тип - полная β-структура - характерен для всей полипептидной цепочки, которая имеет вытянутую форму и удерживается межпептидными водородными связями между смежными параллельными полипептидными цепями (рис. 3). Эта структура напоминает меха аккордеона. Причем возможны варианты β-структур: они могут быть образованы параллельными цепями (N-концы полипептидных цепей направлены в одну и ту же сторону) и антипараллельными (N-концы направлены в разные стороны). Боковые радикалы одного слоя помещаются между боковыми радикалами другого слоя.
В белках возможны переходы от α-структур к β-структурам и обратно вследствие перестройки водородных связей. Вместо регулярных межпептидных водородных связей вдоль цепи (благодаря им полипептидная цепь скручивается в спираль) происходит раскручивание спирализованных участков и замыкание водородных связей между вытянутыми фрагментами полипептидных цепей. Такой переход обнаружен в кератине - белке волос. При мытье волос щелочными моющими средствами легко разрушается спиральная структура β-кератина и он переходит в α-кератин (вьющиеся волосы распрямляются).
Разрушение регулярных вторичных структур белков (α-спирали и β-структур) по аналогии с плавлением кристалла называют "плавлением" полипептидов. При этом водородные связи рвутся, и полипептидные цепи принимают форму беспорядочного клубка. Следовательно, стабильность вторичных структур определяется межпептидными водородными связями. Остальные типы связей почти не принимают в этом участия, за исключением дисульфидных связей вдоль полипептидной цепи в местах расположения остатков цистеина. Короткие пептиды благодаря дисульфидным связям замыкаются в циклы. Во многих белках одновременно имеются α-спиральные участки и β-структуры. Природных белков, состоящих на 100% из α-спирали, почти не бывает (исключение составляет парамиозин - мышечный белок, на 96-100% представляющий собой α-спираль), тогда как у синтетических полипептидов 100%-ная спирализация.
Другие белки имеют неодинаковую степень спирализации. Высокая частота α-спиральных структур наблюдается у парамиозина, миоглобина, гемоглобина. Напротив, у трипсина, рибонуклеазы значительная часть полипептидной цепи укладывается в слоистые β-структуры. Белки опорных тканей: кератин (белок волос, шерсти), коллаген (белок сухожилий, кожи), фиброин (белок натурального шелка) имеют β-конфигурацию полипептидных цепей. Разная степень спирализации полипептидных цепей белков говорит о том, что, очевидно, имеются силы, частично нарушающие спирализацию или "ломающие" регулярную укладку полипептидной цепи. Причиной этого является более компактная укладка полипептидной цепи белка в определенном объеме, т. е. в третичную структуру.
Третичная структура белка
Третичной структурой белка называется способ укладки полипептидной цепи в пространстве. По форме третичной структуры белки делятся в основном на глобулярные и фибриллярные. Глобулярные белки чаще всего имеют эллипсовидную форму, а фибриллярные (нитевидные) белки - вытянутую (форма палочки, веретена).
Однако конфигурация третичной структуры белков еще не дает основания думать, что фибриллярные белки имеют только β-структуру, а глобулярные α-спиральные. Есть фибриллярные белки, имеющие спиральную, а не слоисто-складчатую вторичную структуру. Например, α-кератин и парамиозин (белок запирательной мышцы моллюсков), тропомиозины (белки скелетных мышц) относятся к фибриллярным белкам (имеют палочковидную форму), а вторичная структура у них - α-спираль; напротив, в глобулярных белках может быть большое количество β-структур.
Спирализация линейной полипептидной цепи уменьшает ее размеры примерно в 4 раза; а укладка в третичную структуру делает ее в десятки раз более компактной, чем исходная цепь.
Связи, стабилизирующие третичную структуру белка . В стабилизации третичной структуры играют роль связи между боковыми радикалами аминокислот. Эти связи можно разделить на:
- сильные (ковалентные)
[показать]
.
К ковалентным связям относятся дисульфидные связи (-S-S-) между боковыми радикалами цистеинов, находящихся в разных участках полипептидной цепи; изопептидные, или псевдопептидные, - между аминогруппами боковых радикалов лизина, аргинина, а не α-аминогруппами, и СООН-группами боковых радикалов аспарагиновой, глутаминовой и аминолимонной кислот, а не α-карбоксильными группами аминокислот. Отсюда и название этого типа связи - подобная пептидной. Редко встречается эфирная связь, образуемая СООН-группой дикарбоновых аминокислот (аспарагиновой, глутаминовой) и ОН-группой гидроксиаминокислот (серина, треонина).
- слабые (полярные и ван-дер-ваальсовы)
[показать]
.
К полярным связям относятся водородные и ионные. Водородные связи, как обычно, возникают между группой -NН 2 , - ОН или -SН бокового радикала одной аминокислоты и карбоксильной группой другой. Ионные, или электростатические, связи образуются при контакте заряженных групп боковых радикалов -NН + 3 (лизина, аргинина, гистидина) и -СОО - (аспарагиновой и глутаминовой кислот).
Неполярные, или ван-дер-ваальсовы, связи образуются между углеводородными радикалами аминокислот. Гидрофобные радикалы аминокислот аланина, валина, изолейцина, метионина, фенилаланина в водной среде взаимодействуют друг с другом. Слабые ван-дер-ваальсовы связи способствуют формированию гидрофобного ядра из неполярных радикалов внутри белковой глобулы. Чем больше неполярных аминокислот, тем большую роль в укладке полипептидной цепи играют ван-дер-ваальсовы связи.
Многочисленные связи между боковыми радикалами аминокислот определяют пространственную конфигурацию белковой молекулы.
Особенности организации третичной структуры белка . Конформация третичной структуры полипептидной цепи определяется свойствами боковых радикалов входящих в нее аминокислот (которые не оказывают заметного влияния на формирование первичной и вторичной структур) и микроокружением, т. е. средой. При укладке полипептидная цепь белка стремится принять энергетически выгодную форму, характеризующуюся минимумом свободной энергии. Поэтому неполярные R-группы, "избегая" воды, образуют как бы внутреннюю часть третичной структуры белка, где расположена основная часть гидрофобных остатков полипептидной цепи. В центре белковой глобулы почти нет молекул воды. Полярные (гидрофильные) R-группы аминокислоты располагаются снаружи этого гидрофобного ядра и окружены молекулами воды. Полипептидная цепь причудливо изгибается в трехмерном пространстве. При ее изгибах нарушается вторичная спиральная конформация. "Ломается" цепь в слабых точках, где находятся пролин или гидроксипролин, поскольку эти аминокислоты более подвижны в цепи, образуя только одну водородную связь с другими пептидными группами. Другим местом изгиба является глицин, R-группа которого мала (водород). Поэтому R-группы других аминокислот при укладке стремятся занять свободное пространство в месте нахождения глицина. Ряд аминокислот - аланин, лейцин, глутамат, гистидин - способствуют сохранению устойчивых спиральных структур в белке, а такие, как метионин, валин, изолейцин, аспарагиновая кислота, благоприятствуют образованию β-структур. В молекуле белка с третичной конфигурацией встречаются участки в виде α-спиралей (спирализованные), β-структур (слоистые) и беспорядочного клубка. Только правильная пространственная укладка белка делает его активным; нарушение ее приводит к изменению свойств белка и потере биологической активности.
Четвертичная структура белка
Белки, состоящие из одной полипептидной цепи, имеют только третичную структуру. К ним относятся миоглобин - белок мышечной ткани, участвующий в связывании кислорода, ряд ферментов (лизоцим, пепсин, трипсин и т. д.). Однако некоторые белки построены из нескольких полипептидных цепей, каждая из которых имеет третичную структуру. Для таких белков введено понятие четвертичной структуры, которая представляет собой организацию нескольких полипептидных цепей с третичной структурой в единую функциональную молекулу белка. Такой белок с четвертичной структурой называется олигомером, а его полипептидные цепи с третичной структурой - протомерами или субъединицами (рис. 4).

При четвертичном уровне организации белки сохраняют основную конфигурацию третичной структуры (глобулярную или фибриллярную). Например, гемоглобин - белок, имеющий четвертичную структуру, состоит из четырех субъединиц. Каждая из субъединиц - глобулярный белок и в целом гемоглобин тоже имеет глобулярную конфигурацию. Белки волос и шерсти - кератины, относящиеся по третичной структуре к фибриллярным белкам, имеют фибриллярную конформацию и четвертичную структуру.
Стабилизация четвертичной структуры белков . Все белки, у которых обнаружена четвертичная структура, выделены в виде индивидуальных макромолекул, не распадающихся на субъединицы. Контакты между поверхностями субъединиц возможны только за счет полярных групп аминокислотных остатков, поскольку при формировании третичной структуры каждой из полипептидных цепей боковые радикалы неполярных аминокислот (составляющих большую часть всех протеиногенных аминокислот) спрятаны внутри субъединицы. Между их полярными группами образуются многочисленные ионные (солевые), водородные, а в некоторых случаях и дисульфидные связи, которые прочно удерживают субъединицы в виде организованного комплекса. Применение веществ, разрывающих водородные связи, или веществ, восстанавливающих дисульфидные мостики, вызывает дезагрегацию протомеров и разрушение четвертичной структуры белка. В табл. 1 суммированы данные о связях, стабилизирующих разные уровни организации белковой молекулы [показать] .
| Таблица 1. Характеристика связей, участвующих в структурной организации белков | ||
| Уровень организации | Типы связей (по прочности) | Разновидность связи |
| Первичная (линейная полипeптидная цепь) | Ковалентные (сильные) | Пептидная - между α-амино- и α-карбоксильными группами аминокислот |
| Вторичная (α-спираль, β-структуры) | Слабые | Водородные - между пептидными группами (каждой первой и четвертой) одной полипептидной цепи или между пептидными группами смежных полипептидных цепей |
| Ковалентные (сильные) | Дисульфидные - дисульфидные петли в пределах линейного участка полипептидной цепи | |
| Третичная (глобулярная, фибриллярная) | Ковалентные (сильные) | Дисульфидные, изопептидные, сложноэфирные - между боковыми радикалами аминокислот разных участков полипептидной цепи |
| Слабые | Водородные - между боковыми радикалами аминокислот разных участков полипептидной цепи
Ионные (солевые) - между противоположно заряженными группами боковых радикалов аминокислот полипептидной цепи Ван-дер-ваальсовы - между неполярными боковыми радикалами аминокислот полипептидной цепи |
|
| Четвертичная (глобулярная, фибриллярная) | Слабые | Ионные - между противоположно заряженными группами боковых радикалов аминокислот каждой из субъединиц
Водородные - между боковыми радикалами аминокислотных остатков, расположенными на поверхности контактирующих участков субъединиц |
| Ковалентные (сильные) | Дисульфидные - между остатками цистеина каждой из контактирующих поверхностей разных субъединиц | |
Особенности структурной организации некоторых фибриллярных белков
Структурная организация фибриллярных белков имеет ряд особенностей по сравнению с глобулярными белками. Эти особенности можно проследить на примере кератина, фиброина и коллагена. Кератины существуют в α- и β-конформациях. α-Кератины и фиброин имеют слоисто-складчатую вторичную структуру, однако в кератине цепи параллельны, а в фиброине антипараллельны (см. рис. 3); кроме того, в кератине имеются межцепочечные дисульфидные связи, а у фиброина они отсутствуют. Разрыв дисульфидных связей приводит к разъединению полипептидных цепей в кератинах. Напротив, образование максимального числа дисульфидных связей в кератинах путем воздействия окислителей создает прочную пространственную структуру. Вообще у фибриллярных белков в отличие от глобулярных порой трудно строго разграничить разные уровни организации. Если принять (как для глобулярного белка), что третичная структура должна образовываться путем укладки в пространстве одной полипептидной цепи, а четвертичная - нескольких цепей, то в фибриллярных белках уже при формировании вторичной структуры участвует несколько полипептидных цепей. Типичным примером фибриллярного белка является коллаген, который относится к самым распространенным белкам организма человека (около 1/3 от массы всех белков). Он содержится в тканях, обладающих высокой прочностью и малой растяжимостью (кости, сухожилия, кожа, зубы и т. д.). В коллагене треть аминокислотных остатков приходится на глицин, а около четверти или чуть более - на пролин или гидроксипролин.

Изолированная полипептидная цепь коллагена (первичная структура) похожа на ломаную линию. Она содержит около 1000 аминокислот и имеет молекулярную массу порядка 10 5 (рис. 5, а, б). Полипептидная цепь построена из повторяющейся тройки аминокислот (триплет) следующего состава: гли-А-В, где А и В - любые, кроме глицина, аминокислоты (чаше всего пролин и гидроксипролин). Полипептидные цепи коллагена (или α-цепи) при формировании вторичной и третичной структур (рис. 5, в и г) не могут давать типичных α-спиралей, имеющих винтовую симметрию. Этому мешают пролин, гидроксипролин и глицин (антиспиральные аминокислоты). Поэтому три α-цепи образуют как бы скрученные спирали подобно трем нитям, обвивающим цилиндр. Три спиральные α-цепи формируют повторяющуюся структуру коллагена, которая называется тропоколлагеном (рис. 5, г). Тропоколлаген по своей организации является третичной структурой коллагена. Плоские кольца пролина и оксипролина, регулярно чередующиеся вдоль цепи, придают ей жесткость, как и межцепочечные связи между α-цепями тропоколлагена (поэтому коллаген устойчив к растяжению). Тропоколлаген является, по существу, субъединицей фибрилл коллагена. Укладка тропоколлагеновых субъединиц в четвертичную структуру коллагена происходит ступенеобразно (рис. 5, д).
Стабилизация структур коллагена происходит за счет межцепочечных водородных, ионных и ван-дер-ваальсовых связей и небольшого количества ковалентных связей.
α-Цепи коллагена имеют разное химическое строение. Различают α 1 -цепи разных видов (I, II, III, IV) и α 2 -цепи. В зависимости от того, какие α 1 - и α 2 -цепи участвуют в образовании трехцепочечной спирали тропоколлагена, различают четыре типа коллагена:
- первый тип - две α 1 (I) и одна α 2 -цепи;
- второй тип - три α 1 (II)-цепи;
- третий тип - три α 1 (III)-цепи;
- четвертый тип - три α 1 (IV)-цепи.
Наиболее распространен коллаген первого типа: он содержится в костной ткани, коже, сухожилиях; коллаген второго типа содержится в хрящевой ткани и т. д. В одном виде ткани могут быть разные типы коллагена.
Упорядоченная агрегация коллагеновых структур, их жесткость и инертность обеспечивают высокую прочность коллагеновых волокон. Коллагеновые белки содержат также углеводные компоненты, т. е. являются белок-углеводными комплексами.
Коллаген - внеклеточный белок, который образуется клетками соединительной ткани, входящей во все органы. Поэтому с повреждением коллагена (или нарушением его образования) возникают множественные нарушения опорных функций соединительной ткани органов.
| Страница 3 | всего страниц: 7 |
В организме роль белков чрезвычайно велика. При этом такое название вещество может носить только после того, как приобретает заранее заложенную структуру. До этого момента это полипептид, всего лишь аминокислотная цепь, которая не может выполнять заложенных функций. В общем виде пространственная структура белков (первичная, вторичная, третичная и доменная) - это объемное их строение. Причем наиболее важны для организма вторичные, третичные и доменные структуры.
Предпосылки для изучения белковой структуры
Среди методов изучения строения химических веществ особенную роль играет рентгеноструктурная кристаллография. Посредством нее можно получить информацию о последовательности атомов в молекулярных соединениях и об их пространственной организации. Попросту говоря, рентгеновский снимок можно сделать и для отдельной молекулы, что стало возможным в 30-е годы XX века.
Именно тогда исследователи обнаружили, что многие белки имеют не только линейную структуру, но и могут располагаться в спиралях, клубках и доменах. А в результате проведения массы научных экспериментов выяснилось, что вторичная структура белка - это конечная форма для структурных белков и промежуточная для ферментов и иммуноглобулинов. Это значит, что вещества, которая в конечном итоге имеют третичную или четвертичную структуру, на этапе своего "созревания" должны пройти и этап спиралеобразования, свойственный вторичной структуре.

Образование вторичной белковой структуры
Как только завершился синтез полипептида на рибосомах в шероховатой сети клеточной эндоплазмы, начинает образовываться вторичная структура белка. Сам полипептид представляет собой длинную молекулу, занимающую много места и неудобную для транспорта и выполнения заложенных функций. Потому с целью уменьшения ее размеров и придания ей особенных свойств развивается вторичная структура. Это происходит путем образования альфа-спиралей и бета-слоев. Таким образом получается белок вторичной структуры, который в дальнейшем либо превратится в третичную и четвертичную, либо будет использоваться в таком виде.

Организация вторичной структуры
Как показали многочисленные исследования, вторичная структура белка представляет собой либо альфа-спираль, либо бета-слой, либо чередование участков с данными элементами. Причем вторичная структура - это способ скручивания и спиралеобразования белковой молекулы. Это хаотичный процесс, который происходит за счет водородных связей, возникающих между полярными участками аминокислотных остатков в полипептиде.
Альфа-спираль вторичной структуры
Поскольку в биосинтезе полипептидов участвуют только L-аминокислоты, то образование вторичной структуры белка начинается с закручивания спирали по часовой стрелке (правым ходом). На каждый спиральный виток приходится строго 3,6 остатков аминокислот, а расстояние вдоль спиральной оси составляет 0,54 нм. Это общие свойства для вторичной структуры белка, которые не зависят от вида аминокислот, участвовавших в синтезе.

Определено, что не вся полипептидная цепь спирализуется полностью. В ее структуре присутствуют линейные участки. В частности, молекула белка пепсина спирализована лишь на 30%, лизоцима - на 42%, а гемоглобина - на 75%. Это значит, что вторичная структура белка - это не строго спираль, а комбинирование ее участков с линейными или слоистыми.
Бета-слой вторичной структуры
Вторым типом структурной организации вещества является бета-слой, который представляет собой две и более нити полипептида, соединенные водородной связью. Последняя возникает между свободными CO NH2 группами. Таким образом соединяются, в основном, структурные (мышечные) белки.
Структура белков данного типа такова: одна нить полипептида с обозначением концевых участков А-В параллельно располагается вдоль другой. Единственный нюанс в том, что вторая молекула располагается антипараллельно и обозначается как В-А. Так образуется бета-слой, который может состоять из сколько угодно большого количества полипептидных цепочек, соединенных множественными водородными связями.
Водородная связь
Вторичная структура белка - связь, основанная на множественных полярных взаимодействиях атомов с различными показателями электроотрицательности. Наибольшую способность к образованию такой связи имеют 4 элемента: фтор, кислород, азот и водород. В белках присутствуют все, кроме фтора. Потому водородная связь может образоваться и образуется, давая возможность соединять полипептидные цепи в бета-слои и в альфа-спирали.

Наиболее легко объяснить возникновение водородной связи на примере воды, представляющей собой диполь. Кислород несет сильный отрицательный заряд, а из-за высокой поляризации О-Н связи водород считается положительным. В таком состоянии молекулы присутствуют в некой среде. Причем многие из них соприкасаются и сталкиваются. Тогда кислород от первой молекулы воды притягивает водород от другой. И так по цепочке.
Аналогичные процессы протекают и в белках: электроотрицательный кислород пептидной связи притягивает к себе водород из любого участка другого аминокислотного остатка, образуя водородную связь. Это слабое полярное сопряжение, для разрыва которого требуется потратить порядка 6,3 кДж энергии.
Для сравнения, самая слабая ковалентная связь в белках требует 84 кДж энергии для того, чтобы ее разорвать. Самая сильная ковалентная связь потребует 8400 кДж. Однако количество водородных связей в молекуле белка настолько огромно, что их суммарная энергия позволяет молекуле существовать в агрессивных условиях и сохранять свое пространственное строение. Благодаря этому существуют белки. Структура белков данного типа обеспечивает прочность, которая нужна для функционирования мышц, костей и связок. Настолько огромно значение вторичной структуры белков для организма.

