
05.03.2020
Расположение парасимпатическая нервная система. Симпатическая и парасимпатическая внс
ВНС делится на два отдела – симпатический и парасимпатический. По строению они различаются расположением своих центральных и эффекторных нейронов, своими рефлекторными дугами. Они различаются так же и по своему влиянию на функции иннервируемых структур.
В чем состоят различия этих отделов?
Центральные нейроны симпатической нервной системы расположены, как правило, в сером веществе боковых рогах спинного мозга от 8 шейного до 2-3 поясничных сегментов. Таким образом, симпатические нервы всегда отходят только от спинного мозга в составе спинномозговых нервов по передним (вентральным) корешкам.
Центральные нейроны парасимпатической же нервной системы находятся в крестцовых сегментах спинного мозга (2-4 сегменты), но большая часть центральных нейронов находятся в стволе мозга. Большая же часть нервов парасимпатической системы отходят от головного мозга в составе смешанных черепно - мозговых нервов. А именно: из среднего мозга в составе III пары (глазодвигательный нерв) - иннервируя мышцы ресничного тела и кольцевые мышцы зрачка глаза, из Варолиевого моста выходит лицевой нерв - VII пара (секреторный нерв) иннервирует железы слизистой оболочки носа, слёзные железы, подчелюстную и подъязычную железы. Из продолговатого мозга отходит IX пара - секреторный, языкоглоточный нерв, иннервирует околоушные слюнные железы и железы слизистой щек и губ, X пара (блуждающий нерв) - самая значительная часть парасимпатического отдела ВНС, проходя в грудную и брюшную полости, иннервирует весь комплекс внутренних органов. Нервы, отходящие от крестцовых сегментов (2-4 сегменты), иннервируют органы малого таза и входят в состав подчревного сплетения.
Эффекторные нейроны симпатической нервной системы вынесены на периферию и находятся или в паравертебральных ганглиях (в симпатической нервной цепочке), или превертебрально. Постганглионарные волокна образуют различные сплетения. Среди них наиболее важное значение имеет чревное (солнечное) сплетение, но в его состав входят не только симпатические, но и парасимпатичесике волокна. Оно обеспечивает иннервацию всех органов расположенных в брюшной полости. Вот почему так опасны удары и травмы верхней части брюшной полости (примерно под диафрагму). Они способны вызвать шоковое состояние. Эффекторные нейроны парасимпатической нервной системы всегда находятся в стенках внутренних органов (интрамурально). Таким образом, у парасимпатических нервов большая часть волокон покрыты миелиновой оболочкой, и импульсы достигают эффекторных органов быстрее, чем у симпатической. Это обеспечивает парасимпатические нервные влияния, обеспечивающие сбережение ресурсов органа и организма в целом. Внутренние органы, расположенные в грудной и брюшной полости иннервируются главным образом блуждающим нервом (n.vagus), поэтому эти влияния часто называют вагусными (вагальными).
Имеются существенные различия и в их функциональных характеристиках.
Симпатический отдел, как правило, мобилизирует ресурсы организма для осуществления энергичной деятельности (усиливается работа сердца, сужается просвет кровеносных сосудов и повышается артериальное давление, учащается дыхание, расширяются зрачки и т.п.), но происходит торможение работы пищеварительной системы, за исключением работы слюнных желез. У животных это происходит всегда (слюна нужна им для зализывание возможных ран), но и у некоторых людей при возбуждении слюноотделение усиливается.
Парасимпатическая, напротив, стимулирует работу пищеварительной системы. Неслучайно после сытного обеда отмечается вялость, нам так хочется поспать. При возбуждении парасимпатической нервная система обеспечивает восстановление равновесия внутренней среды организма. Она обеспечивает работу внутренних органов в состоянии покоя.
В функциональном смысле симпатическая и парасимпатическая системы являются антагонистами, дополняя друг друга в процессе поддержания гомеостазиса, поэтому многие органы получают двойную иннервацию - и со стороны симпатического, и со стороны парасимпатического отделов. Но, как правило, у разных людей преобладает или тот или другой отдел ВНС. Неслучайно известный отечественный физиолог Л.А. Орбели попытался классифицировать людей по этому признаку. Он выделил три типа людей: симпатикотоники (с преобладанием тонуса симпатической нервной системы) - их отличает сухость кожи, повышенная возбудимость; второй тип - ваготоники с преобладанием парасимпатических влияний - для них характерна жирная кожа, замедленные реакции. Третий тип -промежуточный . Л.А. Орбели считал знание этих типов важным для врачей, особенно при назначении доз лекарственных препаратов, т. к. одни и те же лекарственные препараты в одинаковой дозе по-разному влияют на пациентов с разным типом ВНС. Даже из повседневной практики каждый из нас может заметить, что чай и кофе вызывают различную реакцию у людей с разным типом функциональной активности ВНС. Из экспериментов на животных известно, что у животных с разным типом ВНС введение брома и кофеина так же оказывает различные реакции. Но на протяжении жизни человека его тип ВНС может изменяться в зависимости от возраста, периода полового созревания, беременности и других влияний. Несмотря на перечисленные различия, обе эти системы, однако, составляют единое функциональное целое, т. к. интеграция их функций осуществляется на уровне ЦНС. Вы уже знаете, что в сером веществе спинного мозга центры вегетативных и соматических рефлексов успешно соседствуют, также как они располагаются близко друг с другом в стволе мозга, и в высших подкорковых центрах. Так же как, в конечном счете, в единстве функционирует вся нервная система.
Подкорковые высшие центры ВНС находятся в гипоталамусе, который связан обширными нервными связями с другими отделами ЦНС. Гипоталамус является в то же время частью лимбической системы мозга. Функции вегетативной нервной системы, как известно, не контролируются сознанием человека. Но именно через гипоталамус и (связанный с ним гипофиз) высшие отделы ЦНС способны влиять на функциональную активность вегетативной нервной системы и через неё на функции внутренних органов. Функции дыхательной, сердечно-сосудистой, пищеварительной и других систем органов непосредственно регулируются вегетативными центрами, расположенными в среднем, продолговатом отделах головного и отделах спинного мозга, которые подчинены в своих функциях центрам гипоталамуса. В то же время туда же продолжаются ядра черной субстанции, черные ядра, располдоженные и в среднем мозге, ретикулярная формация. Действительно, реализация влияния психических реакций человека на соматические – повышение артериального давления при гневе, повышенное потоотделение при страхе, пересыхание во рту при волнении и многие другие проявления психических состояний, – происходит при участии гипоталамуса и ВНС под влиянием коры больших полушарий.
Гипоталамус является частью промежуточного мозга. В нем можно выделить передний отдел (передний гипоталамус) и задний отдел (задний гипоталамус). В гипоталамусе расположены многочисленные скопления серого вещества - ядра. Их более 32 пар. По своему расположению они делятся на области - преоптическую, переднюю, среднюю и заднюю. В каждой из этих областей лежат группы ядер, отвечающих за вегетативную регуляцию функций, а также ядра, выделяющие нейрогормоны. Эти ядра различают также по их функциям. Так, в передней области находятся ядра, выполняющие функции регуляции теплоотдачи за счёт расширения кровеносных сосудов и увеличения отделения пота. А ядра, регулирующие теплопродукцию (за счёт повышения катаболических реакций и непроизвольных мышечных сокращений), располагаются в задней области гипоталамуса. В гипоталамусе расположены центры регуляции всех видов обмена веществ - белкового, жирового, углеводного, центры голода и насыщения. Среди групп ядер гипоталамуса находятся центры регуляции водно-солевого обмена, связанные с центром жажды, формирующего мотивацию поиска и потребления воды.
В передней области гипоталамуса лежат ядра, участвующие в процессах регуляции чередования сна и бодрствования (циркадных ритмов), а так же в регуляции полового поведения.
Проекции вегетативных центров представлены и в коре больших полушарий - в основном в лимбической и ростральной части коры. Парасимпатические и симпатические проекции одних и тех же органов проецируются в одни и те же или близко расположенные участки коры, это понятно, т. к. они совместно обеспечивают функции этих органов. Установлено, что парасмпатические проекции в коре представлены гораздо шире, чем симпатические, однако, функционально симпатические влияния более продолжительны, чем парасимпатические. Это связано с различиями медиаторов , которые выделяются окончаниями симатических (адреналин и норадреналин) и парасимпатических (ацетилхолин) волокон. Ацетилхолин - медиатор парасимпатической системы - быстро инактивируется ферментом ацетилхолинэстеразой (холинэстеразой) и её влияния быстро сходят на нет, в то время как адреналин и норадреналин инактивируются значительно медленнее (ферментом моноаминоксидазой), их влияние усиливается норадреналином и адреналином, выделяемыми надпочечниками. Таким образом, симпатические влияния длятся дольше и оказываются более выраженными, чем парасимпатические. Однако, во время сна парасимпатические влияния на все наши функции превалируют, что способствует восстановлению ресурсов организма.
Но, несмотря на различия в строении и функциях различных отделов ВНС, различия соматической и вегетативной систем, - в конечном итоге, вся нервнаяя система работает как единое целое и интеграция происходит на всех уровнях как спинного, так и головного мозга. И высшим уровнем интеграции, безусловно, является кора больших полушарий головного мозга, объединяющая как нашу двигательную активность, работу наших внутренних органов так и, в конечном итоге, всю психическую деятельность человека.
18. Физиология надпочечников, роль их гормонов в регуляции функций организма, взаимоотношении с другими регуляторными механизмами .
Парасимпатическая нервная система осуществляет сужение бронхов, замедление и ослабление сердечных сокращений; сужение сосудов сердца; пополнение энергоресурсов (синтез гликогена в печени и усиление процессов пищеварения); усиление процессов мочеобразования в почках и обеспечение акта мочеиспускания (сокращение мышц мочевого пузыря и расслабление его сфинктера) и др. Парасимпатическая нервная система преимущественно оказывает пусковые влияния: сужение зрачка, бронхов, включение деятельности пищеварительных желез и т. п.
Деятельность парасимпатического отдела вегетативной нервной системы направлена на текущую регуляцию функционального состояния, на поддержание постоянства внутренней среды - гомеостаза. Парасимпатический отдел обеспечивает восстановление различных физиологических показателей, резко измененных после напряженной мышечной работы, пополнение израсходованных энергоресурсов. Медиатор парасимпатической системы - ацетилхолин, снижая чувствительность адренорецепторов к действию адреналина и норадреналина, оказывает определенное антистрессорное влияние.
Рис. 6. Вегетативные рефлексы
Влияние положения тела на частоту сердечных сокращений
(уд./мин). (По.МогендовичМ.Р., 1972)
3.6.4. Вегетативные рефлексы
Через вегетативные симпатические и парасимпатические пути ЦНС осуществляет некоторые вегетативные рефлексы, начинающиеся с различных рецепторов внешней и внутренней среды: висцеро-висцеральные (с внутренних органов на внутренние органы - например, дыхательно-сердечный рефлекс); дермо-висцеральные (с кожных покровов - изменение деятельности внутренних органов при раздражении активных точек кожи, например, иглоукалыванием, точечным массажем); с рецепторов глазного яблока - глазо-сердечный рефлекс Ашнера (урежение сердцебиений при надавливании на глазные яблоки - парасимпатический эффект); моторно-висцеральные- например, ортостэтическая проба (учащение сердцебиения при переходе из положения лежа в положение стоя - симпатический эффект) и др. (рис. 6). Они используются для оценки функционального состояния организма и особенно состояния вегетативной нервной системы (оценки влияния симпатического или парасимпатического ее отдела).
11. ПОНЯТИЕ О НЕРВНО МЫШЕЧНОМ(ДВИГАТЕЛЬНОМ) АППАРАТЕ. ДВИГАТЕЛЬНЫЕ ЕДИНИЦЫ(ДЕ) И ИХ КЛАССИФИКАЦИЯ. ФУНКЦИОНАЛЬНЫЕ ОСОБЕННОСТИ РАЗЛИЧНЫХ ТИПОВ ДЕ И ИХ КЛАССИФИКАЦИЯ. ФУНКЦИОНАЛЬНЫЕ ОСОБЕННОСТИ РАЗЛИЧНЫХ ТИПОВ ДЕ.(ПОРОГ АКТИВАЦИИ,СКОРОСТЬ И СИЛА СОКРАЩЕНИЯ, УТОМЛЯЕМОСТЬ И ДР) Значение типа ДЕ при различных видах мышечной деятельности.
12. Мышечная композиция. Функциональные возможности разных типов мышечных волокон (медленные и быстрые). Их роль в проявлении мышечной силы, скорости и выносливости. Одной из важнейших характеристик скелетных мышц, влияющих на силу сокращения, является состав (композиция) мышечных волокон. Различают 3 типа мышечных волокон - медленные неутомляемые (I типа), быстрые неутомляемые или промежуточные (11-а типа) и быстрые утомляемые (11-б типа).
Медленные волокна (1 типа), их обозначают также SO - Slow Oxydative (англ. - медленные окислительные) - это выносливые (неутомляемые) и легко возбудимые волокна, с богатым кровоснабжением, большим количеством митохондрий, запасов миоглобина и
с использованием окислительных процессов энергообразования (аэробные). Их, в среднем, у человека 50%. Они легко включаются в работу при малейших напряжениях мышц, очень выносливы, но не обладают достаточной силой. Чаще всего они используются при поддержании ненагрузочной статической работы, например, при сохранении позы.
Быстрые утомляемые волокна (11-б типа) или FG - Fast Glicolitic (быстрые гликолитические) используют анаэробные процессы энергообразования (гликолиз). Они менее возбудимы, включаются при больших нагрузках и обеспечивают быстрые и мощные сокращения мышц. Зато эти волокна быстро утомляются. Их примерно 30%. Волокна промежуточного типа (П-а) - быстрые неутомляемые, окислительные, их около 20%. В среднем, для разных мышц характерно различное соотношение медленных неутомляемых и быстрых утомляемых волокон. Так, в трехглавой мышце плеча преобладают быстрые волокна (67%) над медленными (33%), что обеспечивает скоростно-силовые возможности этой мышцы (рис. 14), а для более медленной и выносливой камбаловидной мышцы характерно наличие 84% медленных и всего 16% быстрых волокон (Салтан Б., 1979).
Однако, состав мышечных волокон в одной и той же мышце имеет огромные индивидуальные различия, зависящие от врожденных типологических особенностей человека. К моменту рождения человека его мышцы содержат лишь медленные волокна, но под влиянием нервной регуляции устанавливается в ходе онтогенеза генетически заданное индивидуальное соотношение мышечных волокон разного типа. По мере перехода от зрелого возраста к пожилому число быстрых волокон у человека заметно снижается и, соответственно, уменьшается мышечная сила. Например, наибольшее количество быстрых волокон в наружной головке 4-х главой мышцы бедра мужчины (около 59-63%) отмечается в возрасте 20-40 лет, а в возрасте 60-65 лет их число почти на 1/3 меньше (45%).

Рис. 14. Состав мышечных волокон в разных мышцах
Медленные - черным цветом; быстрые - серым
Количество тех или других мышечных волокон не изменяется в процессе тренировки. Возможно только нарастание толщины (гипертрофия) отдельных волокон, а также некоторое изменение свойств промежуточных волокон. При направленности тренировочного процесса на развитие силы происходит нарастание объема быстрых волокон, что и обеспечивает повышение силы тренируемых мышц.
Характер нервных импульсов изменяет силу сокращения мышц тремя способами:
Существенное значение имеют механические условия работы мышцы -точка приложения ее силы и точка приложения сопротивления (поднимаемого груза). Например, при сгибании в локте вес поднимаемого груза может быть порядка 40 кг и более, при этом сила мышц-сгибателей достигает 250 кг, а тяга сухожилий - 500 кг.
Между силой и скоростью сокращения мышцы существует определенное соотношение, имеющее вид гиперболы (соотношение сила - скорость, по А. Хиллу). Чем выше сила, развиваемая мышцей, тем меньше скорость ее сокращения, и наоборот, с нарастанием скорости сокращения падает величина усилия. Наибольшую скорость развивает мышца, работающая без нагрузки. Скорость мышечного сокращения зависит от скорости передвижения поперечных мостиков, т. е. от частоты гребковых движений в единицу времени. В быстрых ДЕ эта частота выше, чем в медленных ДЕ, и, соответственно, потребляется больше энергии АТФ. Во время сокращения мышечных волокон в 1 с происходит примерно от 5 до 50 циклов прикрепления-отсоединения поперечных мостиков. При этом никаких колебаний силы в целой мышце не ощущается, так как ДЕ работают асинхронно. Лишь при утомлении возникает синхронная работа ДЕ, и в мышцах появляется дрожь (тремор утомления).
13. ОДИНОЧНОЕ И ТЕТАНИЧЕСКОЕ СОКРАЩЕНИЕ МЫШЕЧНОГО ВОЛОКНА. ЭЛЕКТРОМИОГРАММА. При единичном надпороговом раздражении двигательного нерва или самой мышцы возбуждение мышечного волокна сопровождается
одиночным сокращением. Эта форма механической реакции состоит из 3 фаз: латентного или скрытого периода, фазы сокращения и фазы расслабления. Самой короткой фазой является скрытый период, когда в мышце происходит электромеханическая передача. Фаза расслабления обычно в 1.5-2 раза более продолжительна, чем фаза сокращения, а при утомлении затягивается на значительное время.
Если интервалы между нервными импульсами короче, чем длительность одиночного сокращения, то возникает явление суперпозиции - наложение механических эффектов мышечного волокна друг на друга и наблюдается сложная форма сокращения - тетанус. Различают 2 формы тетануса - зубчатый тетанус, возникающий при более редком раздражений, когда происходит попадание каждого следующего нервного импульса в фазу расслабления отдельных оди ночных сокращений, и сплошной или гладкий тетанус, возникающий при более частом раздражении, когда каждый следующий импульс попадает в фазу сокращения (рис. 11). Таким образом, (в некоторых границах) между частотой импульсов возбуждения и амплитудой сокращения волокон ДЕ существует определенное соотношение: при небольшой частоте (например, 5-8 имп. в 1с)

Рис. П. Одиночное сокращение, зубчатый и сплошной тетанус камбаловидпой мышцы человека (по: Зимкин Н.В. и др., 1984). Верхняя кривая - сокращение мышцы, нижняя - отметка раздражения мышцы, справа указана частота раздражени я
возникают одиночные сокращения, при увеличении частоты (15-20 имп. в 1с) - зубчатый тетанус, при дальнейшем нарастании частоты (25-60 имп. в 1 с) - гладкий тетанус. Одиночное сокращение - более слабое и менее утомительное, чем тетаническое. Зато тетанус обеспечивает в несколько раз более мощное, хотя и кратковременное сокращение мышечного волокна.
Сокращение целой мышцы зависит от формы сокращения отдельных ДЕ и их координации во времени. При обеспечении длительной, но не очень интенсивной работы, отдельные ДЕ сокращаются попеременно (рис. 12), поддерживая общее напряжение мышцы на заданном уровне (например, при беге на длинные и сверхдлинные дистанции). При этом отдельные ДЕ могут развивать как одиночные, так и тетанические сокращения, что зависит от частоты нервных импульсов. Утомление в этом случае развивается медленно, так как, работая по очереди, ДЕ в промежутках между активацией успевают восстанавливаться. Однако для мощного кратковременного усилия (например, поднятия штанги) требуется синхронизация активности отдельных ДЕ, т. е. одновременное возбуждение практически всех ДЕ. Это, в свою очередь, требует одновременной активации

Рис. 12. Различные режимы работы двигательных единиц (ДЕ)
соответствующих нервных центров и достигается в результате длительной тренировки. При этом осуществляется мощное и весьма утомительное тетаническое сокращение.
Амплитуда сокращения одиночного волокна не зависит от силы надпорогового раздражения (закон «Все или ничего»). В отличие от этого, при нарастании силы надпорогового раздражения сокращение целой мышцы постепенно растет до максимальной амплитуды.
Работа мышцы с небольшой нагрузкой сопровождается редкой частотой нервных импульсов и вовлечением небольшого числа ДЕ. В этих условиях, накладывая отводящие электроды на кожу над мышцей и используя усилительную аппаратуру, можно на экране осциллографа или с применением чернильной записи на бумаге зарегистрировать одиночные потенциалы действия отдельных Д Е. В случае же значительных напряжений потенциалы действия многих ДЕ алгебраически суммируются и возникает сложная интегрированная кривая записи электрической активности целой мышцы - электромиограмма (ЭМГ).
Форма ЭМГ отражает характер работы мышцы: при статических усилиях она имеет непрерывный вид, а при динамической работе - вид отдельных пачек импульсов, приуроченных, в основном, к начальному моменту сокращения мышцы и разделенных периодами «электрического молчания». Особенно хорошо ритмичность появления подобных пачек наблюдается у спортсменов при циклической работе (рис. 13). У маленьких детей и неадаптированных к такой работе лиц четких периодов отдыха не наблюдается, что отражает недостаточное расслабление мышечных волокон работающей мышцы.
Чем больше внешняя нагрузка и cилa сокращения мышцы, тем выше амплитуда ее ЭМГ. Это связано с увеличением частоты нервных импульсов, вовлечением большего числа ДЕ в мышце и синхронизацией
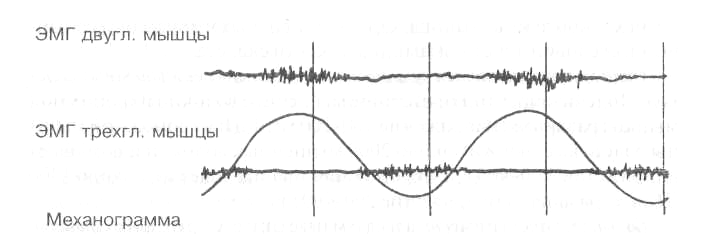
Рис. 13. Электромиограмма мышц-антагонистов при циклической работе
их активности. Современная многоканальная аппаратура позволяет производить одновременную регистрацию ЭМГ многих мышц на разных каналах. При выполнении спортсменом сложных движений можно видеть на полученных ЭМГ кривых не только характер активности отдельных мышц, но и оценить моменты и порядок их включения или выключения в различные фазы двигательных актов. Записи ЭМГ, полученные в естественных условиях двигательной деятельности, можно передавать к регистрирующей аппаратуре по телефону или радиотелеметрически. Анализ частоты, амплитуды и формы ЭМГ (например, с помощью специальных компьютерных программ) позволяет получить важную информацию об особенностях техники выполняемого спортивного упражнения и степени ее освоения обследуемым спортсменом.
По мере развития утомления при той же величине мышечного усилия амплитуда ЭМГ нарастает. Это связано с тем, что снижение сократительной способности утомленных ДЕ компенсируется нервными центрами вовлечением в работу дополнительных ДЕ, т. е. путем увеличения количества активных мышечных волокон. Кроме того, усиливается синхронизация активности ДЕ, что также повышает амплитуду суммарной ЭМГ.
14. Механизм сокращения и расслабления мышечного волокна. Теория скольжения. Роль саркоплазматического ретикулума и ионов кальция в сокращении. При произвольной внутренней команде сокращение мышцы человека начинается примерно через 0.05 с (50 мс). За это время моторная команда передается от коры больших полушарий к мотонейронам спинного мозга и по двигательным волокнам к мышце. Подойдя к мышце, процесс возбуждения должен с помощью медиатора преодолеть нервно-мышечный синапс, что занимает примерно 0.5 мс. Медиатором здесь является ацетилхолин, который содержится в синаптических пузырьках в пресинаптической части синапса. Нервный им пульс вызывает перемещение синаптических пузырьков к пресинаптической мембране, их опорожнение и выход медиатора в синаптическую щель. Действие ацетилхолина на постсинаптическую мембрану чрезвычайно кратковременно, после чего он разрушается ацетилхолинэстеразой на уксусную кислоту и холин. По мере расходования запасы ацетилхолина постоянно пополняются путем его синтезирования в пресинаптической мембране. Однако, при очень частой и длительной импульсации мотонейрона расход ацетилхолина превышает его пополнение, а также снижается чувствительность постсинаптической мембраны к его действию, в результате чего нарушается проведение возбуждения через нервно-мышечный синапс. Эти процессы лежат в основе периферических механизмов утомления при длительной и тяжелой мышечной работе.
Выделившийся всинаптическую щель медиатор прикрепляется к рецепторам постсинаптической мембраны и вызывает в ней явления деполяризации. Небольшое подпороговое раздражение вызывает лишь местное возбуждение небольшой амплитуды - потенциал концевой пластинки (ПКП).
При достаточной частоте нервных импульсов ПКП достигает порогового значения и на мышечной мембране развивается мышечный потенциал действия. Он (со скоростью 5 ) распространяется вдоль по поверхности мышечного волокна и заходите поперечные
трубочки внутрь волокна. Повышая проницаемость клеточных мембран, потенциал действия вызывает выход из цистерн и трубочек саркоплазматического ретикулума ионов Са, которые проникают в миофибриллы, к центрам связывания этих ионов на молекулах актина.
Под влиянием Садлинные молекулы тропомиозина проворачиваются вдоль оси и скрываются в желобки между сферическими молекулами актина, открывая участки прикрепления головок миозина к актину. Тем самым между актином и миозином образуются так называемые поперечные мостики. При этом головки миозина совершают гребковые движения, обеспечивая скольжение нитей актина вдоль нитей миозина с обоих концов саркомера к его центру, т. е. механическую реакцию мышечного волокна (рис. 10).
Энергия гребкового движения одного мостика производит перемещение на 1 % длины актиновой нити. Для дальнейшего скольжения сократительных белков друг относительно друга мостики между актином и миозином должны распадаться и вновь образовываться на следующем центре связывания Са. Такой процесс происходит в результате активации в этот момент молекул миозина. Миозин приобретает свойства фермента АТФ-азы, который вызывает распад АТФ. Выделившаяся при распаде АТФ энергия приводит к разрушению

Рис. 10. Схема электромеханической связи в мышечном волокне
На А: состояние покоя, на Б - возбуждение и сокращение
да - потенциал действия, мм - мембрана мышечного волокна,
п _ поперечные трубочки, т - продольные трубочки и цистерны с ионами
Са , а - тонкие нити актина, м - толстые нити миозина
с утолщениями (головками) на концах. Зет-мембранами ограничены
саркомеры миофибрилл. Толстые стрелки - распространение потенциала
действия при возбуждении волокна и перемещение ионов Саиз цистерн
и продольных трубочек в миофибриллы, где они содействуют образованию
мостиков между нитями актином и миозином и скольжение этих нитей
(сокращение волокна) за счет гребковых движений головок миозина.
имеющихся мостиков и образованию в присутствии Сановых мостиков на следующем участке актиновой нити. В результате повторения подобных процессов многократного образования и распада мостиков сокращается длина отдельных саркомеров и всего мышечного волокна в целом. Максимальная концентрация кальция в миофибрилле достигается уже через 3 мс после появления потенциала действия в поперечных трубочках, а максимальное напряжение мышечного волокна - через 20 мс.
Весь процесс от появления мышечного потенциала действия до сокращения мышечного волокна называется электромеханической связью (или электромеханическим сопряжением). В результате сокращения мышечного волокна актин и миозин более равномерно распределяются внутри саркомера, и исчезает видимая под микроскопом поперечная исчерченность мышцы.
Расслабление мышечного волокна связано с работой особого механизма - «кальциевого насоса», который обеспечивает откачку ионов Саиз миофибрилл обратно в трубочки саркоплазматического ретикулума. На это также тратится энергия АТФ.
15. Механизм регуляции силы сокращения мышц (число активных ДЕ, частота импульсации мотонейронов, синхронизация сокращения мышечных волокон разных ДЕ во времени). Характер нервных импульсов изменяет силу сокращения мышц тремя способами:
1) увеличением числа активных ДЕ - это механизм вовлечения или рекрутирования ДЕ (сначала происходит вовлечение медленных и более возбудимых ДЕ, затем - высокопороговых быстрых Д Е);
2) увеличением частоты нервных импульсов, в результате чего происходит переход от слабых одиночных сокращений к сильным тетаническим сокращениям мышечных волокон;
3) увеличением синхронизации ДЕ, при этом происходит увеличение силы сокращения целой мышцы за счет одновременной тяги всех активных мышечных волокон.
По строению она подобна симпатической – также состоит из центральных и периферических образований. Центральная часть (сегментарные центры) представлена ядрами среднего, продолговатого мозга и крестцового отдела спинного мозга, а периферическая – нервными узлами, волокнами, сплетениями, а также синаптическими и рецепторными окончаниями. Передача возбуждения к исполнительным органам, как и в симпатической системе, осуществляется по двухнейронному пути: первый нейрон (преганглионарный) находится в ядрах головного и спинного мозга, второй – далеко на периферии, в нервных узлах. Преганглионарные парасимпатические волокна сходны с симпатическими по диаметру, одинаково миелинизированы и медиатором обоих видов волокон является ацетилхолин.
Несмотря на отмеченные сходства, парасимпатическая нервная система отличается от симпатической рядом особенностей.
1. Её центральные образования расположены в трех различных участках мозга.
2. Узлы парасимпатической системы в основной массе мелкие, располагаются диффузно на поверхности или в толще иннервируемых органов.
3. Характерной особенностью парасимпатической системы является наличие многочисленных нервных узлов и отдельных нервных клеток в составе нервов (внутристволовые ганглии и нейроны).
4. Отростки парасимпатических преганглионарных нейронов значительно более длинные, чем симпатических, а у постганглионарных, наоборот, очень короткие.
5. Зона распространения парасимпатических волокон значительно меньше; они иннервируют не все, а только определенные органы, которые снабжаются и симпатической иннервацией.
6. Постганглионарные волокна парасимпатической системы передают импульс посредством ацетилхолина, а симпатические – как правило, с участием норадреналина.
Сегментарные центры парасимпатической системы в среднем мозге представлены ядрами глазодвигательного нерва (Вестфаля-Эдингера-Якубовича), расположенными в покрышке ножек мозга под сильвиевым водопроводом на уровне верхних бугорков четверохолмия. В продолговатом мозге сегментарными парасимпатическими центрами являются:
1) верхние слюноотделительные ядра лицевого нерва (VII пара);
2) нижние слюноотделительные ядра языкоглоточного нерва (IX пара), расположенные в средней части ромбовидной ямки на границе моста и продолговатого мозга;
3) дорзальное ядро блуждающего нерва (X пара), которое образует видимое невооруженным глазом возвышение на дне ромбовидной ямки, называемое треугольником блуждающего нерва. Кроме того, поблизости с дорзальным находится ядро одиночного тракта, являющееся чувствительным ядром блуждающего нерва. (Рис. 6)
Все перечисленные ядра целиком состоят из нейронов ретикулярного типа с длинными маловетвистыми дендритами и только благодаря компактному расположению клеток выделяются из расположенной по соседству ретикулярной формации.
Преганглионарные волокна из среднемозговых ядер выходят в составе глазодвигательного нерва, (Рис. 7,8) проникают через глазную щель в орбиту и заканчиваются синапсами на эфферентных клетках ресничного узла, расположенного в глубине глазницы. Нейроны этого узла характеризуются округлой формой, средними размерами и диффузным расположением элементов тигроидного вещества. Постганглионарные волокна этого узла образуют два коротких ресничных нерва – латеральный и медиальный. Они вступают в глазное яблоко и разветвляются в аккомодационных гладких мышцах ресничного тела и в мышце, суживающей зрачок. Рефлекс изменения величины зрачка и установка хрусталика находятся под контролем центров заднего таламуса, переднего двухолмия и коры мозга. При наркозе, во сне и нарушении коры зрачок максимально сужен, что указывает на функциональный или структурный перерыв путей между добавочным ядром и корой мозга.
Из верхнего слюноотделительного ядра преганглионарные волокна идут сначала в составе лицевого нерва, затем, отделяясь от него, образуют большой каменистый нерв, который далее соединяется с глубоким каменистым нервом, образуя нерв крыловидного канала, который достигает одноименного узла. (Рис. 7,8) Постганглионарные волокна крыловидного (или крылонебного) узла иннервируют слизистые железы полости носа, решетчатой и клиновидной пазух, твердого и мягкого неба, а также слезные железы.
Часть преганглионарных волокон верхнего слюноотделительного ядра, выходящих в составе лицевого нерва, через барабанную струну переходят в язычный нерв, в его составе доходят до поднижнечелюстного и подъязычного узлов, расположенных на поверхности одноименных слюнных желез. Постганглионарные волокна узлов вступают в паренхиму этих желез.
Волокна, выходящие из нижнего слюноотделительного ядра, вступают в языкоглоточный нерв и далее в составе барабанного нерва достигают ушного узла. (Рис. 7,8) Постганглионарные волокна в составе ушно-височного нерва вступают в околоушную слюнную железу.
Крылонёбные, ушные, поднижнечелюстные и подъязычные узлы состоят из мультиполярных нейронов неправильной многоугольной формы, морфологически сходных друг с другом. На их телах имеются многочисленные вдавления, в которых располагаются клетки-сателлиты. Характерной особенностью их цитоплазмы является решетчатое распределение элементов тигроидного вещества. Их короткие дендриты не выходят за пределы узла. Они, закручиваясь вблизи тел нейронов, образуют замкнутые пространства.
Блуждающий нерв (X пара черепных нервов) – самый крупный нерв, обеспечивающий парасимпатическую иннервацию многих органов шеи, грудной и брюшной полости. Он выходит из полости черепа через яремное отверстие и в самой начальной части нерва по его ходу располагаются последовательно два узла: яремный (верхний) и узловой (нижний). Яремный узел содержит в основном чувствительные псевдоуниполярные нейроны, аналогичные нервным клеткам спинномозговых узлов.
Рис. 6. Сегментарные парасимпатические центры головного мозга.
1 – ядра глазодвигательного нерва: А – срединное ядро, Б – добавочные ядра; 2 – верхние слюноотделительные ядра; 3 – нижние слюноотделительные ядра; 4 – дорзальные ядра блуждающего нерва.

Рис. 7. Схема эфферентной парасимпатической иннервации.
1 – добавочное ядро глазодвигательного нерва; 2 – верхнее слюноотделительное ядро; 3 – нижнее слюноотделительное ядро; 4 – заднее ядро блуждающего нерва; 5 – боковое промежуточное ядро крестцового отдела спинного мозга; 6 – глазодвигательный нерв; 7 – лицевой (промежуточный) нерв; 8 – языкоглоточный нерв; 9 – блуждающий нерв; 10 – тазовые внутренние нервы; 11 – ресничный узел; 12 – крылонёбный узел; 13 – ушной узел; 14 – поднижнечелюстной узел; 15 – подъязычный узел; 16 – узлы легочного сплетения; 17 – узлы сердечного сплетения; 18 – чревные узлы; 19 – узлы желудочных и кишечных сплетений; 20 – узлы тазового сплетения.

Рис. 8. Схема краниальной части парасимпатической нервной системы.
1 – глазодвигательный нерв; 2 – лицевой (промежуточный) нерв; 3 – языкоглоточный нерв; 4 – добавочное ядро глазодвигательного нерва; 5 – верхнее слюноотделительное ядро; 6 – нижнее слюноотделительное ядро; 7 – ресничный узел; 8 – крылонебный узел 9 – поднижнечелюстной узел; 10 – ушной узел. Ветви тройничного нерва: 11 – I ветвь; 12 – II ветвь; 13 – III ветвь; 14 – узел тройничного нерва; 15 – блуждающий нерв; 16 – заднее ядро блуждающего нерва; 17 – слёзная железа; 18 – слизистая железа полости носа; 19 – околоушная слюнная железа; 20 – мелкие слюнные и слизистые железы полости рта; 21 – подъязычная слюнная железа; 22 – поднижнечелюстная слюнная железа .
Центральный отросток нейронов яремного узла идет к ядрам блуждающего нерва (дорзальному ядру продолговатого мозга и чувствительному ядру одиночного тракта), периферический отросток уходит к иннервируемым органам и образует в них интероцепторы. От яремного узла отходят ветвь к оболочкам мозга и ушная ветвь. Узловой (нижний) узел (gangi . nodosum ) состоит преимущественно из эффекторных нейронов, но содержит и чувствительные клетки, такие же, как в яремном узле. Он прилегает к краниальному шейному симпатическому узлу и образует с ним связи сетью волокон. От узловатого узла отходят ветви к подъязычному, добавочному, языкоглоточному нервам и к синокаротидной области, от нижнего его полюса отходят верхний гортанный и депрессорный нервы. Депрессорный нерв иннервирует сердце, дугу аорты и легочную артерию.
Блуждающий нерв имеет весьма сложное строение. По составу эфферентных волокон он является преимущественно парасимпатическим. Среди этих эфферентов преобладают волокна, образованные аксонами клеток дорзальных ядер продолговатого мозга. Эти преганглионарные волокна в составе основных стволов блуждающих нервов и их ветвей идут к внутренним органам, где наряду с симпатическими волокнами, участвуют в образовании нервных сплетений. Основная масса преганглионарных волокон заканчивается на нейронах вегетативных узлов, входящих в состав сплетений органов пищеварительной, дыхательной систем и сердца. Но часть преганглионарных волокон не доходит до органных узлов. Дело в том, что в толще блуждающего нерва на всем протяжении, а также в составе его ветвей содержатся многочисленные парасимпатические нейроны в виде узелков и отдельных клеток (Рис. 9). У человека в блуждающем нерве каждой стороны содержится до 1700 нейронов. Среди них имеются чувствительные псевдоуниполярные клетки, но большую часть составляют мультиполярные эффекторные нейроны. Вот на этих клетках и заканчивается часть преганглионарных волокон, распадаясь на терминали, образующие синапсы.
Аксоны этих внутристволовых нейронов образуют постганглионарные волокна, которые, следуя в составе блуждающих нервов, иннервируют гладкую мускулатуру органов, сердечную мышцу и железы. В составе блуждающих нервов проходят также пре- и постганглионарные симпатические волокна, вступившие в них в результате связей с шейными узлами симпатического ствола. В блуждающие нервы включаются ещё афферентные волокна, образованные периферическими отростками нейронов спинномозговых узлов, следующие к органам брюшной полости, а также восходящие волокна, образованные аксонами чувствительных клеток Догеля II типа, расположенных в интрамуральных узлах внутренних органов. Кроме названных, в каждом блуждающем нерве идут соматические двигательные волокна, выходящие из двойного ядра продолговатого мозга. Они иннервируют поперечнополосатую мускулатуру глотки, мягкого нёба, гортани и пищевода.
От шейной части блуждающего нерва отходят ветви, обеспечивающие парасимпатическую иннервацию глотки, гортани, щитовидной и паращитовидных желез, тимуса, трахеи, пищевода и сердца. В образовании сплетений пищевода и трахеи участвуют и ветви грудной части нерва; из неё выходят также бронхиальные ветви, вступающие в легочное сплетение. В брюшной полости блуждающий нерв

Рис. 9. Вегетативный одноотросчатый нейрон лягушки под эпиневрием ветви блуждающего нерва. Прижизненная микроскопия. Фазовый контраст. Ув. 400.
1 – эпиневрий;
2 – ядро нейрона;
3 – ветвь блуждающего нерва.
отделяет ветви, образующие густое желудочное сплетение, от которого отходят стволики к двенадцатиперстной кишке и печени. Чревные ветви выходят в основном из правого блуждающего нерва и вступают в чревное и верхнее брыжеечное сплетения. Далее преганглионарные волокна блуждающего ствола вместе с симпатическими волокнами образуют нижнее брыжеечное, брюшное аортальное и другие сплетения брюшной полости, ветви которых доходят до вне- и внутриорганных узлов печени, селезенки, поджелудочной железы, тонкой и верхней части толстой кишки, почек, надпочечников и др.
Ядра крестцовой части парасимпатической нервной системы располагаются в промежуточной зоне серого вещества спинного мозга на уровне II – IV крестцовых сегментов. Преганглионарные волокна из этих ядер по передним корешкам вступают вначале в крестцовые спинномозговые нервы, затем, отделяясь от них в составе тазовых внутренних нервов, входят в нижнее подчревное (тазовое) сплетение. Парасимпатические преганглионары заканчиваются в околоорганных узлах тазового сплетения, либо в узлах, находящихся внутри органов малого таза. Часть крестцовых преганглионарных волокон уходит вверх и вступает в подчревные нервы, верхнее подчревное и нижнее брыжеечное сплетения. Постганглионарные волокна заканчиваются на гладкой мускулатуре органов, некоторых сосудов и на железах. В тазовых внутренностных нервах, кроме парасимпатических и симпатических эфферентов, содержатся и афферентные волокна (в основном крупные миелиновые). Тазовые внутренностные нервы осуществляют парасимпатическую иннервацию некоторых органов брюшной полости и всех органов малого таза: нисходящей ободочной, сигмовидной и прямой кишки, мочевого пузыря, семенных пузырьков, предстательной железы и влагалища.

Симпатический отдел - это часть вегетативной нервной ткани, который вместе с парасимпатической обеспечивает функционирование внутренних органов, химических реакций, отвечающих за жизнедеятельностью клеток. Но следует знать, что существует метасимпатическая нервная система, часть вегетативной конструкции, располагающаяся на стенках органов и способная сокращаться, контактирующая напрямую с симпатической и парасимпатической, внося корректировки в их деятельность.
Внутренняя среда человека находится под непосредственным воздействием симпатической и парасимпатической нервной системы.
Симпатический отдел локализуется в ЦНС. Спинальная нервная ткань осуществляет свою деятельность под контролем находящихся в мозге нервных клеток.
Все элементы симпатического ствола, находящегося по две от позвоночника стороны, непосредственно связаны с соответствующими органами посредством нервных сплетений, при этом каждый обладает собственным сплетением. Внизу позвоночника оба ствола у человека объединяются вместе.
Симпатический ствол принято делить на отделы: поясничный, крестцовый, шейный, грудной.
Симпатическая нервная система концентрируется около сонных артерий шейного отдела, в грудном - сердечное, а также легочное сплетение, в брюшной полости солнечное, брыжеечное, аортальное, подчревные.
Данные сплетения разделяются на меньшие, и от них импульсы двигаются к внутренним органам.
Переход возбуждения с симпатического нерва на соответствующий орган происходит под воздействием химических элементов – симпатинов, выделяемыми нервными клетками.
Они снабжают одни и те же ткани нервами, обеспечивая их взаимосвязь, с центральной системой, зачастую оказывая на данные органы прямопротивоположное действие.
Влияние, которое оказывают симпатическая и парасимпатическая нервная система видно из таблица ниже:
 Вместе они отвечают за сердечнососудистые организмы, органы пищеварения, дыхательной конструкции, выделения, работу гладкой мышцы полых органов, контролируют процессы обмена, рост, размножение.
Если одна начинает преобладать над другой, проявляются симптомы повышенной возбудимости симпатикотония (преобладает симпатическая часть), ваготония (преобладает парасимпатическая).
Симпатикотония проявляется в следующих симптомах: жар, тахикардия, онемения и покалывания в конечностях, повышенный аппетит без появления лишено веса, безразличность к жизни, беспокойные сны, страх смерти без причины, раздражительность, рассеянность, уменьшается слюноотделение, а также потоотделение, проявляется мигрень.
У человека при активации повышенной работы парасимпатического отдела вегетативной конструкции проявляются повышенная потливость, кожа на ощупь холодная и влажная, возникает уменьшение частоты сердечного ритма, становится меньше положенных 60 ударов за 1 минуту, обмороки, увеличивается слюновыделение и дыхательная деятельность. Люди становятся нерешительными, медленными, склонными к депрессиям, невыносливыми.
Парасимпатическая нервная система уменьшает деятельность сердца, имеет свойство расширять сосуды.
Функции
Симпатическая нервная система — это уникальная конструкция элемента вегетативной системы, которая в случае возникшей внезапно необходимости, способна увеличивать способности выполнения организма функций работы, путем собирания возможных ресурсов.
В результате конструкция осуществляет работу, таких органов, как сердца, уменьшает сосуды, увеличивает способность мышц, частоту, силу ритма сердца, работоспособность, затормаживает секреторную, всасывающую способность ЖКТ.

СНС поддерживает такие функции, как нормальное функционирование внутренней среды в активном положении, включаясь в действие при физических усилиях, стрессовых ситуациях, болезнях, потерях крови и регулирует обмен веществ, например, увеличение сахара, свёртываемость крови, другие.
Она наиболее полно активизируется во время психологических потрясений, путем вырабатывания адреналина (усиливающего действия нервных клеток) в надпочечниках, который дает возможность человеку быстрее и эффективнее реагировать на внезапно возникшее факторы из внешнего мира.
Также адреналин способен вырабатываться и при увеличении нагрузки, что также помогает человеку лучше справляться с ней.
После справления с ситуацией, человек чувствует усталость, ему необходимо отдохнуть, это связано с симпатической системой, наиболее полно израсходовавшей возможности организма, в связи с увеличением функций организма во внезапно сложившейся ситуации.
Парасимпатическая НС выполняет функции саморегуляции, защиты организма, отвечает за опорожнение человека.
Саморегуляция организма имеет восстановительный эффект, работая в спокойном состоянии.
Парасимпатическая часть деятельности вегетативной нервной системы проявляется понижением силы и частоты ритма сердца, стимулированием работы ЖКТ при понижении глюкозы в составе крови и т. д.
Осуществляя защитные рефлексы, она избавляет организм человека от чужеродных элементов (чихание, рвота и другие).
Таблица ниже отражает, как симпатическая и парасимпатическая нервная система действуют на одни и те же элементы организма.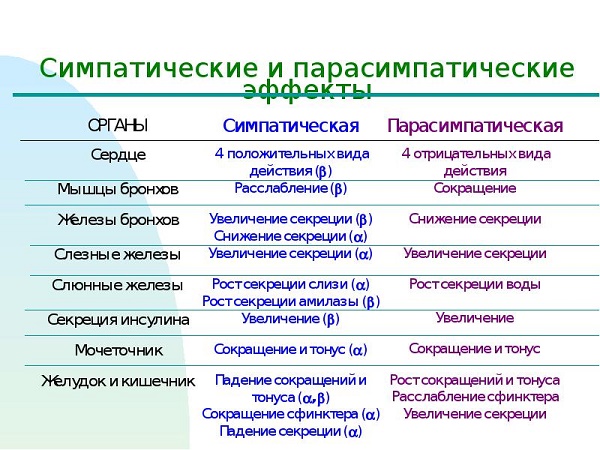
Лечение
Если вы заметили признаки проявления увеличенной чувствительности, надо обратиться к врачу, так как это способно вызвать заболевание язвенного, гипертонического характера, неврастении.
Правильную и эффективную терапию способен назначить только врач! Не надо экспериментировать с организмом, так как последствия, если нервы находятся в состоянии возбудимости достаточно опасное проявление не только для вас, но и для близких вам людей.
При назначении лечения рекомендуется по возможности устранить факторы, взбудораживающие симпатическую нервную систему, будь то физические или эмоциональные нагрузки. Без этого никакое лечение, скорее всего, не поможет, пропив курс лекарств, вы снова заболеете.
Вам необходима уютная домашняя обстановка, сочувствие и помощь близких, свежий воздух, хорошие эмоции.
В первую очередь надо следить за тем, чтобы ничто не поднимало ваши нервы.
Медикаментозные средства, применяющиеся при лечении, относятся в основе к группе сильнодействующих лекарств, поэтому применять их надо осторожно только по назначению или после консультации с врачом.
К назначаемым лекарственным препаратам обычно относят: транквилизаторы («Феназепам», «Реланиум» и другие), нейролептики («Френолон», «Сонапакс»), снотворные, антидепрессанты, ноотропные лекарственные средства и при необходимости сердечные («Коргликон», «Дигитоксин»), сосудистые, седативные, вегетативные препараты, курс витаминов.
Хорошо при использовании применять физиотерапию, включающую лечебную физкультуру и массаж, можно заняться дыхательной гимнастикой, плаванием. Они хорошо помогают расслаблять организм.
В любом случае, игнорирование лечение данного заболевания категорически не рекомендуется, необходимо своевременно обратиться к врачу, провести назначенный курс терапии.
Парасимпатическая нервная система состоит из центрального и периферического отделов (рис. 11).
Парасимпатическая часть глазодвигательного нерва (III пара) представлена добавочным ядром, nucl. accessorius, и непарным срединным ядром, расположенными у дна водопровода мозга. Преганглионарные волокна идут в составе глазодвигательного нерва (рис. 12), а затем его корешка, который отделяется от нижней ветви нерва и подходит к ресничному узлу, ganglion ciliare (рис. 13), расположенному в задней части глазницы снаружи от зрительного нерва. В ресничном узле волокна прерываются и постганглионарные волокна в составе коротких ресничных нервов, nn. ciliares breves, проникают в глазное яблоко к m. sphincter pupillae, обеспечивая реакцию зрачка на свет, а также к m. ciliaris, влияющую на изменение кривизны хрусталика.
Рис.11. Парасимпатическая нервная система (по С.П.Семенову).
СМ- средний мозг; ПМ- продолговатый мозг; К-2 - К-4 - крестцовые сегменты спинного мозга, имеющие парасимпатические ядра; 1- ресничный ганглий; 2- крылонебный ганглий; 3- подчелюстной ганглий; 4- ушной ганглий; 5- интрамуральные ганглии; 6- тазовый нерв; 7- ганглии тазового сплетения;III-глазодвигательный нерв; VII- лицевой нерв; IX- языкоглоточный нерв; Х- блуждающий нерв.
Центральный отдел включает ядра, расположенные в мозговом стволе, а именно в среднем мозге (мезенцефалический отдел), мосту и продолговатом мозге (бульбарный отдел), а также в спинном мозге (сакральный отдел).
Периферический отдел представлен:
1) преганглионарными парасимпатическими волокнами, проходящими в составе III, VII, IX, X пар черепных нервов и передних корешков, а затем передних ветвей II - IV крестцовых спинномозговых нервов;
2) узлами III порядка, ganglia terminalia;
3) постганглионарными волокнами, которые заканчиваются на гладкомышечных и железистых клетках.
Через ресничный узел, не прерываясь, проходят постганглионарные симпатические волокна от plexus ophtalmicus к m. dilatator pupillae и чувствительные волокна - отростки узла тройничного нерва, проходящие в составе n. nasociliaris для иннервации глазного яблока.
Рис.12. Схема парасимпатической иннервации m. sphincter pupillаe и околоушной слюнной железы (из А.Г.Кнорре и И.Д.Лев).
1- окончания постганглионарных нервных волокон в m. sphincter pupillаe; 2- ganglion ciliare; 3- n. oculomotorius; 4- парасимпатическое добавочное ядро глазодвигательного нерва; 5- окончания постганглионарных нервных волокон в околоушной слюнной железе; 6- nucleus salivatorius inferior;7-n.glossopharynge-us; 8 - n. tympanicus; 9- n. auriculotemporalis; 10- n. petrosus minor; 11- ganglion oticum; 12- n. mandibularis.
Рис. 13. Схема связей ресничного узла (из Foss и Herlinger)
1- n. oculomotorius;
2- n. nasociliaris;
3- ramus communicans cum n. nasociliari;
4- a. ophthalmica et plexus ophthalmicus;
5- r. communicans albus;
6- ganglion cervicale superius;
7- ramus sympathicus ad ganglion ciliare;
8- ganglion ciliare;
9- nn. ciliares breves;
10- radix oculomotoria (parasympathica).
Парасимпатическая часть промежуто-лицевого нерва (VII пара) представлена верхним слюноотделительным ядром, nucl. salivatorius superior, которое расположено в ретикулярной формации моста. Аксоны клеток этого ядра являются преганглионарными волокнами. Они проходят в составе промежуточного нерва, который присоединяется к лицевому нерву.
В лицевом канале от лицевого нерва парасимпатические волокна отделяются в виде двух порций. Одна порция обособляется в виде большого каменистого нерва, n. petrosus major, другая - барабанной струны, chorda tympani (рис. 14).
Рис. 14. Схема парасимпатической иннервации слезной железы, подчелюстной и подъязычной слюнных желез (из А.Г.Кнорре и И.Д.Лев).
1 - слезная железа; 2 - n. lacrimalis; 3 - n. zygomaticus; 4 - g. pterygopalatinum; 5 - r. nasalis posterior; 6 - nn. palatini; 7 - n. petrosus major; 8, 9 - nucleus salivatorius superior; 10 - n. facialis; 11 - chorda tympani; 12 - n. lingualis; 13 - glandula submandibularis; 14 - glandula sublingualis.
Рис. 15. Схема связей крылонебного узла (из Foss и Herlinger).
1- n. maxillaris;
2- n. petrosus major (radix parasympathica);
3- n. canalis pterygoidei;
4- n. petrosus profundus (radix sympathica);
5- g. pterygopalatinum;
6- nn. palatini;
7- nn. nasales posteriores;
8- nn. pterygopalatini;
9- n. zygomaticus.
Большой каменистый нерв отходит на уровне узла коленца, покидает канал через одноименную расщелину и, располагаясь на передней поверхности пирамиды в одноименной борозде, доходит до верхушки пирамиды, где через рваное отверстие покидает полость черепа. В области этого отверстия он соединяется с глубоким каменистым нервом (симпатическим) и образует нерв крыловидного канала, n. canalis pterygoidei. В составе этого нерва преганглионарные парасимпатические волокна достигают крылонебного узла, ganglion pterygopalatinum, и заканчиваются на его клетках (рис. 15).
Постганглионарные волокна от узла в составе небных нервов, nn. palatini, направляются в полость рта и иннервируют железы слизистой оболочки твердого и мягкого неба, а также в составе задних носовых ветвей, rr. nasales posteriores, иннервируют железы слизистой оболочки полости носа. Меньшая часть постганглионарных волокон достигает слезной железы в составе n. maxillaris, затем n. zygomaticus, анастомотической ветви и n. lacrimalis (рис. 14).
Другая порция преганглионарных парасимпатических волокон в составе chorda tympani присоединяется к язычному нерву, n. lingualis, (из III ветви тройничного нерва) и в составе его подходит к поднижнечелюстному узлу, ganglion submandibulare, и оканчивается в нем. Аксоны клеток узла (постганглионарные волокна) иннервируют поднижнечелюстную и подъязычную слюнные железы (рис. 14).
Парасимпатическая часть языкоглоточного нерва (IX пара) представлена нижним слюноотделительным ядром, nucl. salivatorius inferior, расположенным в ретикулярной формации продолговатого мозга. Преганглионарные волокна выходят из полости черепа через яремное отверстие в составе языкоглоточного нерва, а затем его ветви - барабанного нерва, n. tympanicus, который через барабанный каналец проникает в барабанную полость и вместе с симпатическими волокнами внутреннего сонного сплетения образует барабанное сплетение, где часть парасимпатических волокон прерывается и постганглионарные волокна иннервируют железы слизистой оболочки барабанной полости. Другая часть преганглионарных волокон в составе малого каменистого нерва, n. petrosus minor, выходит через одноименную щель и по одноименной борозде на передней поверхности пирамиды достигает клиновидно-каменистой щели, покидает полость черепа и вступает в ушной узел, ganglion oticum, (рис. 16). Ушной узел располагается на основании черепа под овальным отверстием. Здесь преганглионарные волокна прерываются. Постганглионарные волокна в составе n. mandibularis, а затем n. auriculotemporalis направляются к околоушной слюнной железе (рис.12).
Парасимпатическая часть блуждающего нерва (X пара) представлена дорсальным ядром, nucl. dorsalis n. vagi, расположенным в дорсальной части продолговатого мозга. Преганглионарные волокна от этого ядра в составе блуждающего нерва (рис. 17) выходят через яремное отверстие и далее проходят в составе его ветвей до парасимпатических узлов (III порядка), которые располагаются в стволе и ветвях блуждающего нерва, в вегетативных сплетениях внутренних органов (пищеводном, легочном, сердечном, желудочном, кишечном, поджелудочном и др.) или у ворот органов (печень, почки, селезенка). В стволе и ветвях блуждающего нерва насчитывается около 1700 нервных клеток, которые группируются в мелкие узелки. Постганглионарные волокна парасимпатических узлов иннервируют гладкую мускулатуру и железы внутренних органов шеи, грудной и брюшной полости до сигмовидной кишки.
Рис. 16. Схема связей ушного узла (из Foss и Herlinger).
1- n. petrosus minor;
2- radix sympathica;
3- r. communicans cum n. auriculotemporali;
4- n. . auriculotemporalis;
5- plexus a. meningeae mediae;
6- r. communicans cum n. buccali;
7- g. oticum;
8- n. mandibularis.

Рис. 17. Блуждающий нерв (из А.М.Гринштейна).
1- nucleus dorsalis;
2- nucleus solitarius;
3- nucleus ambiguus;
4- g. superius;
5- r. meningeus;
6- r. auricularis;
7- g. inferius;
8- r. pharyngeus;
9- n. laryngeus superior;
10- n. laryngeus recurrens;
11- r. trachealis;
12- r. cardiacus cervicalis inferior;
13- plexus pulmonalis;
14- trunci vagales et rami gastrici.
Крестцовый отдел парасимпатической части вегетативной нервной системы представлен промежуточно-боковыми ядрами, nuclei intermediolaterales, II-IV крестцовых сегментов спинного мозга. Их аксоны (преганглионарные волокна) покидают спинной мозг в составе передних корешков, а затем передних ветвей спинномозговых нервов, формирующих крестцовое сплетение. Парасимпатические волокна обособляются от крестцового сплетения в виде тазовых внутренностных нервов, nn. splanchnici pelvini, и вступают в нижнее подчревное сплетение. Часть преганглионарных волокон имеет восходящее направление и вступает в подчревные нервы, верхнее подчревное и нижнее брыжеечное сплетения. Эти волокна прерываются в околоорганных или внутриорганных узлах. Постганглионарные волокна иннервируют гладкую мускулатуру и железы нисходящей ободочной, сигмовидной кишки, а также внутренних органов таза.

