
15.03.2025
Диета для профилактики демиелинизации. Рассеянный склероз: можно ли восстановить миелин? Продукты где содержится миелин
Отличительная особенность этих клеток заключается в высоком содержании галактоцереброзида в их плазматической мембране.
Основная информация о структуре миелина получена с помощью рентгено-структурного анализа и электронной микроскопии [ Beniac ea 2000 , Epand ea 1998 , Facci ea 2000 , Holton ea 2000 , Kleywegt ea 1999 , Kirschner ea 1984 , Pritzker ea 2000 , Riccio P., ea 2000 , Raine ea 1984 , Balendiran ea 2000 ]. Уникальной морфологической особенностью миелина является то, что он формируется в результате спирального обвития отростков олигодендроглиоцитов в центральной нервной системе и шванновских клеток на периферии, вокруг аксонов нейронов [ Epand ea 1998 , Pritzker ea 2000 , Balendiran ea 2000 , Grever ea 1997 ]. Таким образом, миелин представляет собой своеобразную мембрану, состоящую из липидного бислоя и белков, связанных с ним. В образовании миелиновой оболочки и структуре миелина ЦНС и периферической нервной системы (ПНС) имеются отличия. При формировании миелина ЦНС один олигодендроглиоцит имеет связи с несколькими сегментами миелина нескольких аксонов; при этом к аксону примыкает отросток олигодендроглиоцита, расположенного на некотором расстоянии от аксона, а внешняя поверхность миелина соприкасается с внеклеточным пространством. Шванновская клетка при образовании миелина ПНС формирует спиральные пластинки миелина и отвечает лишь за отдельный участок миелиновой оболочки между перехватами Ранвье . Цитоплазма шванновской клетки вытесняется из пространства между спиральными витками и остается только на внутренней и наружной поверхностях миелиновой оболочки [ Epand ea 1998 , Garbay ea 2000 ].
Среди белков миелина выделяют так называемые внутренние (intrinsic) и внешние (extrinsic) белки [ Braun ea 1984 ]. Первые прочно связаны с мембраной, проходя сквозь нее, в то время как другие, расположенные поверхностно, связаны слабее. Подобная мембрана является асимметричной по химическому составу и электрическому заряду. Ее экстрацеллюлярная поверхность богата углеводными остатками гликопротеинов и гликолипидов, при этом С-конец гликопротеинов находится на цитоплазматической стороне мембраны, тогда как полисахаридный остаток экспонирован на экстрацеллюлярной поверхности. Расстояние между разнонаправленными гидрофильными группировками липидов в мембране миелина составляет 4,5-5,0 нм, в то время как расстояние между соседними витками спирали - 3,0-5,0 нм. Толщина мультиламеллярного образования, сформированного исключительно липидами, составляет 1,5-3,0 нм [ Epand ea 1998 , Braun ea 1984 , Cuzner ea 1996 , Kirschner ea 1991 ]. Процесс формирования миелина отростками глиальных клеток сопровождается вытеснением цитоплазмы таким образом, что цитоплазматические поверхности мембраны плотно соприкасаются друг с другом, образуя так называемую главную плотную линию (major dense line). Плотный контакт наружных поверхностей мембран, образующихся при спиралевидном обвитии отростков миелинобразующих клеток вокруг аксонов нейронов, способствует формированию, так называемой межпромежуточной линии (interperiod line) [ Epand ea 1998 , Garbay ea 2000 ] ( рис. 1).
Одной из биохимических характеристик, которая отличает миелин от других биологических мембран, является высокое соотношение липид/белок. Белки составляют от 25 до 30% массы сухого вещества миелиновой оболочки. На долю липидов приходится приблизительно 70-75% от сухой массы белого вещества ЦНС млекопитающих; в миелине спинного мозга соотношение липиды: белки выше [ Garbay ea 2000 , Cuzner ea 1996 ]. Из общего количества липидов на долю холестерола приходится около 28%, 43%, на фосфолипиды и 29% составляют галактолипиды . Известно, что липиды оказывают существенное влияние на конформационные характеристики белков, входящих в состав мембраны миелина; последние в свою очередь влияют на свойства липидов [ Epand ea 1998 , Garbay ea 2000 ].
Основной функцией миелина является быстрое проведение нервного импульса по аксонам, которые он окружает. Мембраны клеток, формирующих миелин, плотно соприкасаются, что обеспечивает высокое сопротивление и малую емкость, обеспечивая, таким образом, аксону эффективную изоляцию и предотвращая продольное распространение импульса. Миелин прерывается только в области перехватов Ранвье , которые встречаются через правильные промежутки длинной примерно 1 мм. В связи с тем, что ионные токи не могут проходить сквозь миелин, вход и выход ионов осуществляется лишь в области перехватов. Это ведет к увеличению скорости проведения нервного импульса. Таким образом, по миелинизированным волокнам импульс проводится приблизительно в 5-10 раз быстрее, чем по немиелинизированным [ Epand ea 1998 , Garbay ea 2000 ].
Помимо передачи нервного импульса, миелин участвует в питании нервного волокна, а также выполняет структурную и защитную функции
Центральная нервная система (ЦНС) представляет собой единый механизм, который отвечает за восприятие окружающего мира и рефлексы, а также за управление системой внутренних органов и тканей. Последний пункт выполняет периферический отдел ЦНС с помощью особых клеток, которые называются нейроны. Из них и состоит нервная ткань, которая служит для передачи импульсов.
Отростки, идущие от тела нейрона окружены защитным слоем, который питает нервные волокна и ускоряет передачу импульса, а называется такая защита миелиновой оболочкой. Любой сигнал, передающийся по нервным волокнам, напоминает разряд тока и именно их внешний слой не дает уменьшаться его силе.
Если миелиновая оболочка повреждается, то теряется полноценное восприятие в этом участке тела, но клетка может уцелеть и повреждение со временем зарубцуется. При достаточно серьезных увечьях потребуются препараты, предназначенные для восстановления нервных волокон по типу Мильгаммы, Копаксона и других. В ином случае нерв со временем погибнет и восприятие уменьшится. К болезням, которым свойственна эта проблема относится радикулопатия, полиневропатия и т.д., но наиболее опасным патологическим процессом врачи считают рассеянный склероз (РС). Несмотря на странное название, болезнь не имеет ничего общего с прямым определением этих слов и в переводе означает «множественные рубцы». Возникают они на миелиновой оболочке в спинном и головном мозге вследствие иммунного сбоя, поэтому РС относиться к аутоиммунным заболеваниям. Вместо нервных волокон, на месте очага появляется рубец, состоящий из соединительной ткани, по которому больше не может корректно проходить импульс.
Можно ли как-то восстановить поврежденную нервную ткань или она навсегда останется в искалеченном состоянии вопрос актуальный по сегодняшний день. Врачи до сих пор не могут ответить на него точно и полноценного препарата для возвращения чувствительности нервным окончаниям еще не придумали. Вместо этого существует различные медикаменты, способные уменьшить процесс демиелинизации, улучшить питание поврежденных участков и активизировать регенерацию миелиновой оболочки.
Мильгамма представляет собой нейропротектор для восстановления обмена веществ внутри клеток, что позволяет замедлить процесс разрушения миелина и начать его регенерацию. В основе препарата лежат витамины из группы В, а именно:
- Тиамин (В1). Он крайне необходим для усвоения сахара в организме и получения энергии. При остром дефиците тиамина у человека нарушается сон и ухудшается память. Он становится нервным, а иногда подавленным, как при депрессии. В некоторых случаях наблюдаются симптомы парестезии (мурашки по коже, уменьшение чувствительности и покалывания в кончиках пальцев);
- Пиридоксин (В6). Такой витамин играет немаловажную роль в выработке аминокислот, а также некоторых гормонов (дофамин, серотонин и т. д.). Несмотря на редкие случаи нехватки пиридоксина в организме, из-за его дефицита возможно понижение умственных способностей и ослабление иммунной защиты;
- Цианокобаломин (В12). Он служит для улучшения проводимости нервных волокон вследствие чего улучшается чувствительность, а также для улучшения синтеза крови. При нехватке цианокобаломина у человека развиваются галлюцинации, деменция (слабоумие), наблюдаются сбои в ритме сердца и парестезии.
Благодаря такому составу Мильгама способна остановить окисление клеток свободными радикалами (реактивными веществами), что повлияет на восстановление чувствительности тканей и нервных окончаний. После курса приема таблеток отмечается снижение симптоматики и улучшение общего состояния, а употреблять препарат нужно в 2 этапа. В первом потребуется сделать не менее 10 инъекций, а затем перейти на таблетки (Мильгамма композитум) и принимать их 3 раза в сутки на протяжении 1,5 месяца.

Стафаглабрин сульфат применяется уже достаточно давно для восстановления чувствительности тканей и самих нервных волокон. Растение с чьих корней добывается этот препарат растет только в субтропическом и тропическом климате, например, в Японии, Индии и Бирме и называется оно стефания гладкая. Известны случаи получения Стафаглабрин сульфата в лабораторных условиях. Возможно, это из-за того, что стефанию гладкую можно выращивать как суспензионную культуру, то есть в подвешенном положении в стеклянных колбах с жидкостью. Сам по себе препарат представляет собой сернокислую соль, которая имеет высокую температуру плавления (более 240 °С). Относится она к алкалоиду (азотосодержащему соединению) стефарину, который считается основой для проапорфина.
Стефаглабрин сульфат служит для уменьшения активности ферментов из класса гидролаз (холинэстеразы) и для улучшения тонусы гладких мышц, которые присутствуют в стенках сосудов, органов (полых внутри) и лимфоузлов. Известно также, что препарат мало токсичен и способен уменьшить кровяное давление. В былые времена лекарство использовали как антихолинэстеразное средство, но затем ученые пришли к выводу, что Стефаглабрин сульфат является ингибитором активности роста соединительной ткани. Из этого выходит, что он задерживает ее развитие и на нервных волокнах не образуются рубцы. Именно поэтому препарат стал активно применять при повреждениях ПНС.
Во время исследований специалисты смогли увидеть рост швановских клеток, которые вырабатывают миелин в периферической нервной системе. Такое явление означает, что под влиянием медикамента у больного заметно улучшается проводимость импульса по аксону, так как вокруг него снова начала образовываться миелиновая оболочка. С момента получения результатов препарат стал надеждой для многих людей, у которых диагностированы неизлечимые димиелинизирующие патологии.
Решить проблему аутоиммунной патологии только путем восстановления нервных волокон не получится. Ведь независимо от того сколько придется устранить очагов повреждений, проблема будет возвращаться, так как иммунная система реагирует на миелин как на инородное тело и уничтожает его. Устранить такой патологический процесс на сегодняшний день нельзя, но можно больше не задаваться вопросом восстанавливаются ли или нет нервные волокна. Людям остается поддерживать свое состояние, угнетая иммунную систему и употребляя препараты по типу Стефаглабрин сульфат для сохранения своего здоровья.
Использовать препарат можно только парентерально, то есть мимо кишечника, например, с помощью инъекций. Дозировка при этом не должна превышать 7-8 мл 0,25% раствора в сутки за 2 укола. Если судить по времени, то обычно в какой-то мере восстанавливается миелиновая оболочка и нервные окончания через 20 дней, а затем нужен перерыв и понять сколько он будет длиться можно, узнав об этом у врача. Лучшего результата, по мнению врачей, можно достичь за счет низких доз, так как побочные эффекты развиваются значительно реже, а эффективность от лечения возрастает.
В лабораторных условиях, вовремя проведение экспериментов над крысами, было установлено, что при концентрации медикамента Стефаглабрин сульфат 0,1-1 мг/кг лечение проходит быстрее чем без него. Заканчивался курс терапии в более ранние сроки, если сравнивать их с животными, которые не принимали это лекарство. Спустя 2-3 месяца у грызунов уже фактически полностью восстановились нервные волокна и импульс передавался по нерву без задержек. У подопытных, которые проходили лечение без этого медикамента восстановление длилось около полугода и не все нервные окончания пришли в норму.
Копаксон
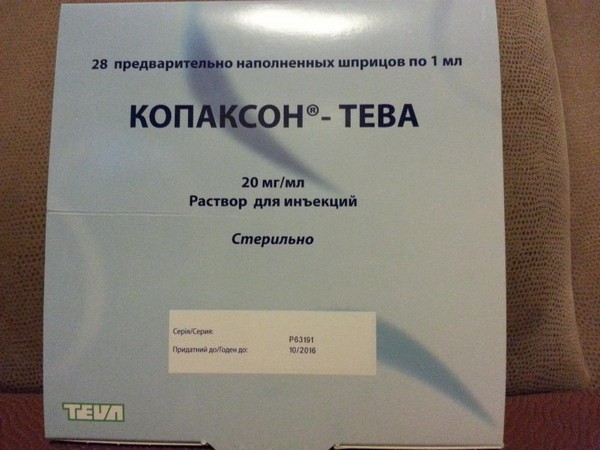
Лекарства от рассеянного склероза не существует, но есть препараты способные уменьшить воздействие иммунной системы на миелиновую оболочку и к ним относится Копаксон. Суть аутоиммунных заболеваний в том, что иммунная система разрушает миелин, расположенный на нервных волокнах. Из-за этого ухудшается проводимость импульсов, а Копаксон способен изменить цель защитной системы организма на себя. Нервные волокна остаются не тронутыми, но если клетки организма уже взялись за разъедание миелиновой оболочки, то препарат сможет их оттеснить. Происходит это явление из-за того, что лекарство очень похоже по своей структуре на миелин, поэтому иммунная система переключает свое внимание именно на него.
Препарат способен не только взять на себя атаку защитной системы организма, но и вырабатывает особые клетки иммунной системы для уменьшения интенсивности болезни, которые называются Тh2-лимфоциты. Механизм их воздействия и образования еще толком не исследован, но существуют различные теории. Среди экспертов есть мнение, что в синтезе Тh2-лимфоцитов участвуют дендритные клетки эпидермиса.
Выработанные супресорные (мутировавшие) лимфоциты, попадая в кровь, быстро проникают в часть нервной системы где находится очаг воспаления. Здесь Тh2-лимфоциты из-за воздействия миелина вырабатывают цитокины, то есть противовоспалительные молекулы. Они начинают постепенно снимать воспаление в этом участке мозга, тем самым улучшая чувствительность нервных окончаний.
Польза от препарата есть не только для лечения самого заболевания, но и самим нервным клеткам, так как Копаксон является нейропротектором. Защитное действие проявляется в стимуляции роста клеток мозга и улучшении липидного обмена. Миелиновая оболочка в основном состоит из липидов, а при многих патологических процессах, связанных с повреждением нервных волокон, происходит их окисление, поэтому повреждается миелин. Препарат Копаксон способен ликвидировать эту проблему, так как повышает естественный антиокислитель организма (мочевая кислота). За счет чего повышается уровень мочевой кислоты не известно, но этот факт доказан в ходе многочисленных экспериментов.
Препарат служит для защиты нервных клеток и уменьшения остроты и частоты обострений. Его можно совмещать с медикаментами Стефаглабрин сульфат и Мильгамма.
Миелиновая оболочка начнет восстанавливаться из-за усиленного роста швановских клеток, а Мильгамма улучшит внутриклеточный обмен веществ и усилит действие обоих препаратов. Использовать их самостоятельно или самостоятельно менять дозировку строго запрещено.
Можно ли восстановить нервные клетки и сколько на это потребуется времени сможет ответить только специалист, ориентируясь на результаты обследования. Принимать самостоятельно какие-либо препараты для улучшения чувствительности тканей запрещено, так как большинство из них имеет гормональную основу, а значит тяжело переносятся организмом.
— это богатая липидами вещество, из которого образуется миелиновая оболочка нервных волокон позвоночных.
Миелин был открыт в 1854 году патологоанатомом Вирхов (1821-1902) с помощью светового микроскопа. Он заметил оболочку вокруг нервных волокон и предложил назвать ее миелиновой (гр. Myelòs = мозг).
В отличие от других биомембран миелин имеет очень высокое содержание липидов (70%) и относительно малый белков (30%). Поскольку макроскопически миелин имеет белую окраску, то високомиелинизовани участка в центральной нервной системе называются белым веществом, в отличие от низькомиелинизованих участков серого вещества.
В ЦНС миелин образуется олигодендроцитов, а на периферии — шванновских клеток.
Функции
Миелиновая оболочка нужна для электрической изоляции аксонов нервных клеток от потенциалов действия других клеток и для ускорения передачи собственного импульса. Она не окружает нервное волокно сплошным слоем, а имеет многочисленные, так называемые, перехвата Ранвье, которые размещаются вдоль волокна через равномерные промежутки на расстоянии около 1 мм (от нескольких сотых долей мм до нескольких мм). Вход и выход ионов осуществляется только в участках этих перехватов, что приводит к значительному ускорению передачи нервного импульса в 5-10 раз.
Состав
Миелин часто рассматривают как специфическую особенность позвоночных. Однако у беспозвоночных животных групп функциональные и структурные аналоги миелина.
Липиды
Липидный компонент (70%) представлен холестерином (25%), галактоцереброизидом (20%), галактосульфатидом (5%), фосфолипидов (50%), среди них главным образом фосфатидилэтаноламин и лецитином.
Белки
Специфическими для миелина белками являются:
- Основной миелиновой белок (англ. Myelin-Basisches Protein = MBP)
- Миелин-ассоциированный гликопротеин
- Коннексин 32
- Периферический миелин
Заболевания
Причиной рассеянного склероза является разрушение миелина клетками собственной иммунной системы, это — нейродегенеративное аутоиммунное заболевание. Похожие процессы характерны и для синдрома Гийена-Барре, когда клетки собственной иммунной системы проникают через слой миелина и повреждают нервные волокна, иногда вплоть до полного их прерывания. Но в отличие от рассеянного склероза при этом заболевании большинство клеток самостоятельно восстанавливают свою целостность.
Наследственные болезни, при которых нарушается первичная миелинизация в ЦНС называются Лейкодистрофии. К ним относятся болезнь Пелицеус — Мерцбахера, болезнь Краббе и сцеплена с X-сцепленная адренолейкодистрофия.
Также обсуждается роль миелина в развитии психических заболеваний, например шизофрении.
При пернициозной анемии, которая возникает в результате недостнього поступления с пищей витамина В12 наблюдается дегенерация миелиновой оболочки и атрофия.
|
Компонент | |||
|
В миелине |
В белом веществе |
В сером веществе |
|
|
Белки | |||
|
Общ.фосфолипиды | |||
|
Фофатидилсерин | |||
|
Фосфатидилинозит | |||
|
Холестерин | |||
|
Сфингомиелин | |||
|
Церебозиды | |||
|
Плазмогены | |||
|
ганглиозиды | |||
Строение нервного волокна. Миелиновая оболочка
Из аксонов нейронов образуются нервные волокна . Каждое волокно состоит из осевого цилиндра (аксона), внутри которого находится аксоплазма с нейрофибриллами, митохондриями и синаптическими пузырьками.
В зависимости от строения оболочек, окутывающих аксоны, нервные волокна делят на: безмиелиновые (безмякотные) и миелиновые (мякотные).
1. Безмиелиновое волокно
Безмиелиновое волокно состоит из 7-12 тонких аксонов, которые проходят внутри тяжа, образованного цепочкой нейроглиальных клеток.
Безмиелиновые волокна имеют постганглионарные нервные волокна, входящие в состав вегетативной нервной системы.
2. Миелиновое волокно
Миелиновое волокно состоит из одного аксона, который окутан миелиновой оболочкой и окружен глиальными клетками.
Миелиновая оболочка образована плазматической мембраной Шванновской или олигодендроглиальной клетки, которая сложена вдвое и многократно обернута вокруг аксона. По длине аксона миелиновая оболочка образует короткие чехольчики - междоузлия , между которыми имеются немиелизированные участки – перехваты Ранвье.
Миелиновое волокно более совершенно, чем безмиелиновое, т.к. оно обладает более высокой скоростью передачи нервного импульса.
Миелиновые волокна имеют проводниковая система соматической нервной системы, преганглионарные волокна вегетативной нервной системы.
Молекулярная организация миелиновой оболочки (по Х.Хидену)
1-аксона; 2-миелин; 3-ось волокна; 4-белок (наружные слои); 5-липиды; 6-белок (внутренний слой); 7-холестерин; 8-цереброзид; 9- сфингомиелин; 10-фосфатидилсерин.
Химический состав миелина
Миелин содержит много липидов, мало цитоплазмы и белков. Мембрана миелиновой оболочки в расчете на сухую массу содержит 70% липидов (что в целом составляет около 65% всех липидов мозга) и 30% белков. 90% всех липидов миелина приходиться на холестерин, фосфолипиды и цереброзиды. Миелин содержит немного ганглиозидов.
Белковый состав миелина периферической и центральной нервной системы различен. Миелин ЦНС содержит три белка:
Протеолипид, составляет 35 – 50% от общего содержания белка в миелине, имеет молекулярную массу 25кДа, растворим в органических растворителях;
Основной белок А 1 , составляет 30% от общего содержания белка в миелине, имеет молекулярную массу 18кДа, растворим в слабых кислотах;
Белки Вольфграма - несколько кислых белков большой массы растворимых в органических растворителях, функция которых неизвестна. Составляют 20% от общего содержания белка в миелине.
В миелине ПНС, протеолипид отсутствует, основной белок представлен белками А 1 (немного), Р 0 и Р 2 .
В миелине обнаружена ферментативная активность:
холестеролэстеразы;
фосфодиэстеразы, гидролизирующей цAMФ;
протеинкиназы А, фосфорилирующей основной белок;
сфингомиелиназы;
карбоангидразы.
Миелин благодаря своему строению обладает более высокой стабильностью (устойчивостью к разложению), чем другие плазматических мембран.
ОБМЕН ВЕЩЕСТВ И ЭНЕРГИИ В НЕРВНОЙ ТКАНИ
Энергетический обмен нервной ткани
Для мозга характерна высокая интенсивность энергетического обмена с преобладанием аэробных процессов. При массе 1400г (2% массы тела), он получает около 20% крови, выбрасываемой сердцем и приблизительно 30% всего кислорода, находящегося в артериальной крови.
Максимальный энергетический обмен в мозге наблюдается к периоду окончания миелинизации и завершения процессов дифференцировки у детей в возрасте 4 лет. При этом быстро растущая нервная ткань потребляет около 50% всего кислорода поступающего в организм.
Максимальная скорость дыхания обнаружена в коре больших полушарий, минимальная – в спинном мозге и периферических нервах. Нейронам свойственен аэробный обмен, тогда как метаболизм нейроглии адаптирован и к анаэробным условиям. Интенсивность дыхания серого вещества в 4 раза выше, чем белого.
В отличие от других органов, головной мозг практически не располагает запасами кислорода. Резервный кислород мозга расходуется в течение 10-12 секунд, что объясняет высокую чувствительность нервной системы к гипоксии.
Основным энергетическим субстратом нервной ткани является глюкоза, окисления которой обеспечивается ее энергией на 85-90%. Нервная ткань потребляет до 70% свободной глюкозы, выделяемой из печени в артериальную кровь. В физиологических условиях 85-90% глюкозы метаболизируется аэробным путем, а 10-15% - анаэробным.
В качестве дополнительных энергетических субстратов нейроны и глиальные клетки могут использовать аминокислоты , в первую очередь глутамат и аспартат.
В экстремальных состояниях нервная ткань переключается на кетоновые тела (до 50% всей энергии).
В ранний постнатальный период в мозге также окисляются свободные жирные кислоты и кетоновые тела .
Полученная энергия тратится в первую очередь:
на создание мембранного потенциала , который используется для проведения нервных импульсов и активного транспорта;
для работы цитоскелета , обеспечивающего аксональный транспорт, выделение нейромедиаторов, пространственной ориентации структурных единиц нейрона;
для синтеза новых веществ , в первую очередь нейромедиаторов, нейропептидов, а также нуклеиновых кислот, белков, липидов;
для обезвреживания аммиака .
Обмен углеводов нервной ткани
Нервная ткань характеризуется высоким углеводным обменом, в котором преобладает катаболизм глюкозы. Так как нервная ткань инсулиннезависима , с высокой активностью гексокиназы (имеет низкую константу Михаэлиса Ментона) и низкой концентрацией глюкозы, глюкоза поступает из крови в нервную ткань постоянно, даже если в крови мало глюкозы и отсутствует инсулин.
Активность ПФШ нервной ткани невелика. НАДФН 2 используется при синтезе нейромедиаторов, аминокислот, липидов, гликолипидов, компонентов нуклеиновых кислот и для работы антиоксидантной системы.
Высокая активность ПФШ наблюдается у детей в период миелинизации и при травмах головного мозга.
Обмен белков и аминокислот нервной ткани
Нервная ткань характеризуется высоким обменом аминокислот и белков.
Скорость синтеза и распада белков в разных отделах головного мозга неодинакова. Белки серого вещества больших полушарий и белки мозжечка отличаются высокой скоростью обновления, что связано с синтезом медиаторов, БАВ, специфических белков. Белое вещество, богатое проводниковыми структурам, обновляется особенно медленно.
Аминокислоты в нервной ткани используется как:
источник «сырья» для синтеза белков, пептидов, некоторых липидов, ряда гормонов, витаминов, биогенных аминов и др. В сером веществе преобладает синтез БАВ, в белом – белков миелиновой оболочки.
нейротрансмиттеры и нейромодуляторы. Аминокислоты и их производные участвуют в синаптической передаче (глу), в осуществлении межнейрональных связей.
Источник энергии . Нервная ткань окисляет в ЦТК аминокислоты глутаминовой группы и аминокислоты с разветвленной боковой цепью (лейцин, изолейцин, валин).
Для выведения азота . При возбуждение нервной системы возрастает образование аммиака (в первую очередь за счет дезаминирования АМФ), который связывается с глутаминовой кислотой с образованием глутамина. Реакцию с затратой АТФ катализирует глутаминсинтетаза.
Аминокислоты глутаминовой группы имеют самый активный метаболизм в нервной ткани.
N -ацетиласпарагиновая кислота (АцА) является частью внутриклеточного пула анионов и резервуаром ацетильных групп. Ацетильные группы экзогенной АцА служат источником углерода для синтеза жирных кислот в развивающемся мозге.
Ароматические аминокислоты имеют особое значение как предшественники катехоламинов и серотонина.
Метионин является источником метильных групп и на 80% используется для синтеза белка.
Цистатионин важен для синтеза сульфитидов и сульфатилрованных мукополисахаридов.
Обмен азота нервной ткани
Непосредственным источником аммиака в головном мозге служит непрямое дезаминирование аминокислот с участием глутаматдегидрогеназы, а так же дезаминирование с участием АМФ–ИМФ цикла.

Обезвреживание токсичного аммиака в нервной ткани происходит с участием α-кетоглутарата и глутамата.


Липидный обмен нервной ткани
Особенностью обмена липидов в мозге является то, что они не используются в качестве энергетического материала, а в основном идут на строительные нужды. Липидный обмен в целом невысокий и различается в белом и сером веществе.
В нейронах серого вещества из фосфоглицеридов наиболее интенсивно обновляются фосфотидилхолины и особенно фосфотидилинозитол, который является предшественником внутриклеточного посредника ИТФ.
Обмен липидов в миелиновых оболочках протекает медленно, очень медленно обновляются холестерин, цереброзиды и сфингомиелины. У новорожденных холестерин синтезируется в самой нервной ткани, у взрослых этот синтез резко снижается, вплоть до полного прекращения.
Авторы: В.П. ЧЕХОНИН, О.И. ГУРИНА, Т.Б. ДМИТРИЕВА, А.В. СЕМЕНОВА, Е.А. САВЧЕНКО, М.Э. ГРИГОРЬЕВ Лаборатория иммунохимии Государственного научного центра социальной и судебной психиатрии им. В.П. Сербского, г. Москва.В обзоре рассмотрены физико-химические свойства, биологическая роль основного белка миелина – одного из белков, входящих в состав миелиновой оболочки. Приведены литературные данные, касающиеся процессов фосфорилирования, метилирования, ацилирования ОБМ в организме человека и животных. Продемонстрированы процессы взаимодействия с липидами. С использованием иммуногистохимических методов исследования, Northern анализа показан синтез ОБМ в онтогенезе. Большое внимание уделено анализу клинико-диагностической значимости ОБМ, а также перспективам применения его в качестве одного из критериев контроля течения рассеянного склероза, маркера нарушения процессов миелинизации при опухолях головного мозга, при гидроцефалии и другой неврологической патологии.
Ключевые слова: основной белок миелина, онтогенез, рассеянный склероз, гидроцефалия, опухоли головного мозга, демиелинизирующие заболевания.
ВВЕДЕНИЕ. Молекулярная организация миелина. Основная информация о структуре миелина получена с помощью рентгено-структурного анализа и электронной микроскопии . Уникальной морфологической особенностью миелина является то, что он формируется в результате спирального обвития отростков олигодендроглиоцитов в центральной нервной системе и шванновских клеток на периферии, вокруг аксонов нейронов . Таким образом, миелин представляет собой своеобразную мембрану, состоящую из липидного бислоя и белков, связанных с ним. В образовании миелиновой оболочки и структуре миелина ЦНС и периферической нервной системы (ПНС) имеются отличия. При формировании миелина ЦНС один олигодендроглиоцит имеет связи с несколькими сегментами миелина нескольких аксонов; при этом к аксону примыкает отросток олигодендроглиоцита, расположенного на некотором расстоянии от аксона, а внешняя поверхность миелина соприкасается с внеклеточным пространством. Шванновская клетка при образовании миелина ПНС формирует спиральные пластинки миелина и отвечает лишь за отдельный участок миелиновой оболочки между перехватами Ранвье. Цитоплазма шванновской клетки вытесняется из пространства между спиральными витками и остается только на внутренней и наружной поверхностях миелиновой оболочки .
Среди белков миелина выделяют так называемые внутренние (intrinsic) и внешние (extrinsic) белки . Первые прочно связаны с мембраной, проходя сквозь нее, в то время как другие, расположенные поверхностно, связаны слабее. Подобная мембрана является асимметричной по химическому составу и электрическому заряду. Ее экстрацеллюлярная поверхность богата углеводными остатками гликопротеинов и гликолипидов, при этом С-конец гликопротеинов находится на цитоплазматической стороне мембраны, тогда как полисахаридный остаток экспонирован на экстрацеллюлярной поверхности. Расстояние между разнонаправленными гидрофильными группировками липидов в мембране миелина составляет 4,5-5,0 нм, в то время как расстояние между соседними витками спирали - 3,0-5,0 нм. Толщина мультиламеллярного образования, сформированного исключительно липидами, составляет 1,5-3,0 нм .
Процесс формирования миелина отростками глиальных клеток сопровож-дается вытеснением цитоплазмы таким образом, что цитоплазматические поверх-ности мембраны плотно соприкасаются друг с другом, образуя так называемую главную плотную линию (major dense line). Плотный контакт наружных поверхностей мембран, образующихся при спиралевидном обвитии отростков миелинобразующих клеток вокруг аксонов нейронов, способствует формирова-нию, так называемой межпромежуточной линии (interperiod line)
Одной из биохимических характеристик, которая отличает миелин от других биологических мембран, является высокое соотношение липид/белок. Белки составляют от 25 до 30% массы сухого вещества миелиновой оболочки. На долю липидов приходится приблизительно 70-75% от сухой массы белого вещества ЦНС млекопитающих; в миелине спинного мозга соотношение липиды:белки выше . Из общего количества липидов на долю холестерола приходится около 28%, 43% – на фосфолипиды и 29% составляют галактолипиды. Известно, что липиды оказывают существенное влияние на конформационные характеристики белков, входящих в состав мембраны миелина; последние в свою очередь влияют на свойства липидов .
Основной функцией миелина является быстрое проведение нервного импульса по аксонам, которые он окружает. Мембраны клеток, формирующих миелин, плотно соприкасаются, что обеспечивает высокое сопротивление и малую емкость, обеспечивая, таким образом, аксону эффективную изоляцию и предотвращая продольное распространение импульса. Миелин прерывается только в области перехватов Ранвье, которые встречаются через правильные промежутки длинной примерно 1 мм. В связи с тем, что ионные токи не могут проходить сквозь миелин, вход и выход ионов осуществляется лишь в области перехватов. Это ведет к увеличению скорости проведения нервного импульса. Таким образом, по миелинизированным волокнам импульс проводится приблизительно в 5-10 раз быстрее, чем по немиелинизированным .
Помимо передачи нервного импульса, миелин участвует в питании нервного волокна, а также выполняет структурную и защитную функции
Основной белок миелина
Строение, физико-химические свойства. При электрофоретическом анализе в ПААГ с SDS экстрактов миелиновой оболочки человека определяется до 10 полос. Основную полосу (около 50% всех белков), составлял протеолипидный белок (PLP) с молекулярной массой 30 кДа.
Вторыми в количественном соотношении (около 30%) были белки, входящие в так называемую группу основных белков миелина (ОБМ), соответствующие молекулярным массам от 17 до 21,5 кДа. Данную группу составили 3 изоформы ОБМ с молекулярными массами 21,5 кДа, 18,5 кДа и 17,5 кДа. Первая из них кодируется 7 экзонами; в результате делеции 2 экзонов синтезируется белок молекулярной массой 18,5 кДа. При кодировании же изоформы массой 17,5 кДа были подвержены делеции 5 экзонов . Показано, что ген ОБМ человека расположен на 18 хромосоме и имеет 3 промоторные области, с которых начинается считывание информации .
У различных видов животных было также показано наличие нескольких изоформ данного белка . Так, ОБМ крысы включает в себя 4 изоформы с молекулярными массами 21,5, 18,5, 17,0 и 14,0 кДа. Интересно, что изоформы ОБМ массами 21,5 и 18,5 кДа кодируются экзонами, комплементарными человеческим, за небольшим исключением, касающимся незначительных перестановок последовательностей. В изоформе ОБМ с массой 17,0 кДа делеции подвержен 6 экзон. Делеция 2 и 6 экзонов наблюдается при кодировании изоформы белка массой 14,0 кДа. Эти две изоформы ОБМ крысы, таким образом, не имеют человеческих аналогов. Кроме того, доказано наличие изоформ ОБМ с молекулярными массами 21,5, 17,0 и 14,0 кДа в ткани ЦНС мыши . Низкомолекулярные изоформы белка образуются путем делеции участка хромосомы, кодирующего аминокислотные последовательности в области С-конца. Недавние исследования показали наличие ОБМ с молекулярной массой 21,5 кДа в мозге барана, при этом было доказано, что он не является предшественником низкомолекулярных изоформ белка. Кроме того, ОБМ с молекулярной массой 13,5 кДа был идентифицирован в мозге серебряного карася .
В настоящий момент полностью установлена аминокислотная последовательность 18,5 кДа изоформы ОБМ человека , морской свинки , свиньи . Проводятся исследования по определению аминокислотной последовательности ОБМ кролика, быка, обезьяны .
Интересен тот факт, что человеческий ОБМ имеет вариации последовательностей аминокислот в 46 и 47 положении. Здесь может находиться глицин, как самостоятельно, так и в сочетании с серином . Согласно более ранним исследованиям, у больных с рассеянным склерозом отмечалась замена серина на глицин в 44-49 положениях .
Показано, что среди млекопитающих имеется значительная степень гомологии между аминокислотными последовательностями ОБМ .
Рядом авторов была показана высокая степень гомологии – порядка 80-90% аминокислотной последовательности ОБМ у различных видов животных. Так, аминокислотные последовательности ОБМ человека и быка имеются различия аминокислотных остатков лишь в нескольких положениях, в то время как ОБМ крысы отличаются от ОБМ человека и быка положением 40 аминокислотных остатков в середине полипептидной цепи (от 118 до 157 остатка).
ОБМ содержит необычайно высокий процент (приблизительно 25%) основных аминокислот (аргинин, лизин и гистидин), равномерно распределенных по всей полипептидной цепи, что и обусловливает очень высокую изоэлектрическую точку ОБМ (рI=12-13) . Основная изоформа ОБМ с молекулярной массой 18,5 кДа) в дальнейшем может быть субфракционирована в щелочной среде по зарядам. Подобная неоднородность заряда увеличивается в результате фосфорилирования и дезаминирования in vivo. В процессе дальнейшего выделения белка происходит дополнительное дезаминирование и деградация в области С-конца. Такая гетерогенность зарядов может варьировать у различных индивидуумов в зависимости от возраста и патологического состояния организма .
Фосфорилирование ОБМ. Процесс фосфорилирования является основным источником гетерогенности. Процесс фосфорилирования ОБМ в оптическом нерве крысы возрастает в процессе развития . Фосфорилирование может способствовать приобретению молекулой белка гидрофильных свойств и уменьшать величину положительного заряда. Таким образом, фосфорилированная форма ОБМ должная в наименьшей степени взаимодействовать с анионными фосфолипидами. Это отражается в снижении способности фосфорилированных форм белка к индукции агрегации пузырьков . Кроме этого, и способы модификации, обусловливающие изменения его заряда, влияют на данную способность, а также изменяют организацию липидного слоя .
Наличие в миелине протеинкиназной и фосфорилазной активности объясняют способностью регулировать чрезмерное фосфорилирование ОБМ. Протеинкиназа миелина, выделенного из мозга человека, способна активироваться как кальцием или сАМР , так и фосфатидилинозитол-4-фосфатом . Наличие высоких концентраций фосфатидилинозитолкиназы отмечается в миелине, выделенном из головного мозга быка .
Данный фермент может быть вовлечен в регуляцию механизма контроля чрезмерного фосфорилирования белка. Остатки белка, подвергающиеся фосфорилированию в условиях in vitro, зависят от вида протеинкиназы . Протеинкиназа С важна в качестве регулятора клеточного числа. ОБМ является благоприятным субстратом для действия данного фермента . Некоторые участки этого белка являются специфическими ингибиторами активности протеинкиназы С. Так, было продемонстрировано, что деградация миелина может возрастать при ослаблении регуляторного контроля, обеспечиваемого данным ферментом. Миелиногенез осуществляется при адгезии олигодендроцита к субстрату. Этот процесс сопутствует активации фосфорилирования ОБМ протеинкиназой С . Кроме того, процесс фосфорилирования ОБМ также регулируют ганглиозиды . Фосфорилирование, катализируемое протеинкиназой С, стимулируется ганглиозидами; в то время, как фосфорилирование других участков белка, катализируемое сАМР-зависимой протеинкиназой, ими тормозится. Ганглиозиды подавляют также активацию протеинкиназы С диацилглицеролом. Участки молекулы ОБМ, подвергающиеся фосфорилированию in vitro, были выявлены методом высокоэффективной хроматографии высокого давления. Фосфорилирование in vivo происходит по-разному у различных видов млекопитающих, так, у быка, оно осуществляется в 97 и 165 положениях; у кролика – в 7, 56, 96, 113, 163 положениях. Кроме того, было выявлено, что в развивающемся мозге мыши, процессы фосфорилирования начинаются на самых ранних стадиях , что подтверждает предположение о непосредственном их участии в механизмах миелинизации.
Метилирование ОБМ. Другое преобразование белка, происходящее посттранскрипционно, заключается в метилировании одиночного аргининового остатка в 107 положении. Процесс катализируется специфическим ферментом аргинин-метилтрансферазой. Экспрессия данного фермента регулируется тиреоидными гормонами .
Степень метилирования ОБМ значительно варьирует в процессе развития. На исключительную важность метилирования ОБМ указывает тот факт, что инициация демиелинизации возможна при ингибировании биосинтеза S-аденозил-L-метионина циклолейцином, а формирование компактной структуры миелина подавляется синефунгином – ингибитором метилтрансферазы. S-аденозил-L-метионин является донором метильных групп для аргининового остатка ОБМ . У мышей линии jimpy, характеризующихся гипомиелинизацией, отмечается более низкий, по сравнению с нормальными, уровень ОБМ-специфичной аргинин-N-метилтрансферазы. Процесс миелинизации не может быть успешно завершен при нормальном уровне синтеза ОБМ потому, что метилирование белка не протекает в достаточной степени и становится невозможным его интеграция в миелиновую мембрану. Недавние исследования показали, что у этих мышей страдает и уровень синтеза ОБМ, а также полностью отсутствует синтез PLP. Отсутствие последнего может критически влиять на способность ОБМ внедряться в миелиновую мембрану .
У другой линии мутантных мышей shiverer, нарушение процесса миелинизации происходит в результате иных механизмов . Мыши shiverer являются мутантными аутосомными рецессивными мышами, с дефицитом содержания миелина в ЦНС. Данная мутация заключается в делеции 20 т.п.о. гена, которая приводит к отсутствию ОБМ . Гомозиготные мыши являются отличной поведенческой моделью, у которых наблюдается около 12 дня постнатального развития дрожание, конвульсии и ранняя смерть. Морфологический анализ показал практически полное отсутствие миелина в ткани мозга со слабо миелинизированными аксонами. Миелин у этих мышей был аномальным, представлял собой неплотную оболочку, что косвенным образом свидетельствовало о том, что ОБМ необходим для формирования плотности оболочки . Напротив, миелин ПНС у мышей shiverer был качественно и количественно нормальным, с нормальной толшиной и структурой, относительно небольшие аномалии миелина наблюдались на рентгенограммах седалищного нерва у взрослых мышей shiverer . Биохимические изучения миелина у мышей shiverer показали некоторые изменения в количестве липидов. Однако, отсутствие у таких мышей ОБМ не нарушает формирование компактного миелина в ПНС, которое, возможно, компенсирует другой белок миелина – Pо .
Известно, что все изоформы ОБМ могут подвергаться ацетилированию N-конца. Однако и свободный С-конец способен подвергаться действию карбоксипептидаз. ОБМ подвержен действию различных протеолитических ферментов. Гидролиз белка под действием катепсина D ускоряется в присутствии кислых липидов. Этот процесс может быть ограничен как ферментативно, так и неферментативно при деградации ОБМ в процессе изоляции. Этот метод основан на хроматографическом удалении примесей протеолитических ферментов и исключении неферментативной деградации при высоких значениях рH и температур .
Показано, что минорные фракции ОБМ содержат ковалентно связанный в области серинового остатка в 54 положении фосфатидилинозитолбисфосфат. В процессе экспериментального аллергического энцефаломиелита степень связывания фосфатидилинозитолбисфосфата сначала снижается, а затем возрастает .
Изучение структурной организации молекулы ОБМ в растворе проводились с помощью ЯМР-спектроскопии, флуоресцентной спектроскопии, калориметрии, а также с применением иммунологических методов анализа .
В растворе ОБМ имеет тенденцию к самоассоциации, которая играет важную роль в поддержании компактной структуры миелина. Белок в растворе представлен смесью мономер-гексамерных форм с преобладанием цепей с b-структурой . Преобладание b-структуры и формирование a-структуры индуцируется в фрагментах ОБМ при переносе из водной фазы в трифторэтанол .
Взаимодействие ОБМ с липидами. ОБМ как мембранный компонент, имеет значительное сродство к липидам, с которыми в комплексе и выделяется . Кроме того, будучи поликатионом, ОБМ формирует наиболее стабильные комплексы с анионными липидами . Но, несмотря на то, что степень связывания ОБМ значительно выше с кислыми липидами, она достаточно выражена и в отношении цвиттер-ионов, особенно – со сфингомиелином. ОБМ также взаимодействует с фосфатидилэтаноламином при рН 7,2, где этот липид находится преимущественно в цвиттер-форме. Удивительна способность ОБМ формировать нерастворимые комплексы с SDS как выше, так и ниже изоэлектрической точки .
При формировании комплексов ОБМ с основной массой анионных фосфолипидов, играют роль в равной степени как гидрофобные, так и электростатические взаимодействия . Наиболее выраженное влияние на стабилизацию липидов ОБМ оказывает при интеграции в липидные хвосты .
ОБМ также способствует освобождению глюкозы из многослойных липосом, содержащих GM4 ганглиозид, который является специфическим маркером миелина и олигодендроглии в ЦНС .
Как было показано методом рентгеноструктурного анализа, при формировании миелина происходит погружение большей части ОБМ в слой липидных головок. Известно, что ОБМ ускоряет формирование мультислоя фосфатидилглицерола и индуцирует формирование многослойной мембранной структуры с двойной периодичностью бислоя. Холестерол может увеличивать связывание протеина с поверхностью бислоя, открывая каналы между диацил-липидными головками .
Smith предположил, а работы Yohg и Cheifetz подтвердили, что ОБМ является стимулятором везикулярной агрегации, которая служит моделью молекулярных взаимодействий, имеющих важное значение для формирования компактной структуры миелина и его стабилизации в мультиламелярной структуре мембраны. ОБМ способен индуцировать агрегацию пузырьков, содержащих только фосфатидилхолин, однако степень агрегации значительно усиливается кислыми фосфолипидами. Агрегация фосфолипидных пузырьков под влиянием ОБМ значительно усиливается в присутствии алифатических альдегидов . Высказываются предположения, что возрастание уровня алифатических альдегидов может быть связано с демиелинизирующими заболеваниями . Холестерол увеличивает способность ОБМ к стимуляции агрегации пузырьков фосфатидилсерина .
Brady et. al. , а также Sridhara et. al. показали некоторые различия в свойствах ОБМ, выделенного из нормального миелина и ОБМ, выделенного из ткани мозга больных рассеянным склерозом (РС). ОБМ нормального миелина более активен в отношении индукции формирования многослойной структуры с фосфатидилглицеролом и инициации агрегации везикул фосфатидилхолина . Независимо от источника выделения ОБМ (нормальный миелин или миелин при РС), было показано, что компоненты белка, имеющие одинаковый заряд, в равной степени способны индуцировать формирование липидного мультислоя. Также было показано, что отличия ОБМ из нормального миелина и из миелина при РС, вызваны различием зарядов изомеров, входящих в состав ОБМ .
ОБМ в филогенезе и онтогенезе. Как филогенетически, так и онтогенетически, появление ОБМ может быть связано с дифференцировкой олигодендроглиоцитов и шванновских клеток. В процессе эволюции нервной системы позвоночных дифференцировка глии на клетки двух типов совпадает с появлением миелинизированных волокон, а также с ограничением способности к функциональной регенерации.
Сравнительные исследования ОБМ из ткани мозга различных биологических видов животных показали значительное межвидовое сходство. ОБМ выделен и очищен, а также описаны его свойства из ткани мозга человека, быка, крысы, мыши, морской свинки .
Обнаружение филогенетического сходства гликопротеинов у различных биологических видов дало основание провести исследование этого белка в процессе онтогенеза. Так, Grever и et. al. проводили с помощью иммуногистохимического и Northern blott анализа количественное определение ОБМ в ткани спинного мозга плодов человека с 12 до 24 недели гестации. Развитие структуры миелина исследовали с помощью электронной микроскопии. Тридцать восемь образцов спинного мозга плодов были получены после прерывания внематочной беременности. В период между 12 и 18 неделями гестации показано 15,8-кратное увеличение синтеза ОБМ мРНК. С 18 по 24 недели гестации синтез ОБМ мРНК увеличился в 2,2 раза.
Параллельно проведенный иммуноблот-анализ показал 90,5-кратное увеличение ОБМ (от 0,147 нг/мг до 13,3 нг/мг) между 12 и 18 неделями гестационного развития и приблизительно 11,5-кратное увеличение между 18 и 24 неделями гестации (с 13,3 до 154 нг/мг ткани). Иммуноцитохимический анализ также показал повышение степени окрашивания на ОБМ с увеличением гестационного возраста. У плода с гестационным возрастом 12 недель ОБМ определялся во всех трех боковых канатиках спинного мозга, с 18 недель гестационного развития ОБМ экспрессировался во всем белом веществе мозга, за исключением боковых кортикоспинальных путей и ростральных уровней fasciculus gracilis. Авторы также исследовали структуру миелина с помощью электронной микроскопии. В 12 недель гестации миелиновая оболочка представляла собой редкую неуплотненную пластину, в 18 недель гестации наблюдались отдельные точки компактного миелина, которые экспрессировали ОБМ, в 24 недели гестации компактный миелин наблюдался во всем белом веществе спинного мозга. Таким образом, авторами было продемонстрировано количественное увеличение экспрессии ОБМ, связанное с формированием миелина в течение второго триместра беременности.
Weidenheim и соавт. с помощью иммуногистохимического анализа определяли ОБМ в ткани спинного мозга (в цервикальном, грудном и люмбосакральном уровнях) и стволовой части головного мозга эмбрионов человека на протяжении первого и второго триместров беременности. С 9-10 недель гестации ОБМ-позитивные олигодендроглиоциты наблюдались по периферии эпиндимы. В переднем и боковом канатиках экспрессия ОБМ олигодендроглиоцитами отмечалась с 10-12 недель гестационного развития. В заднем канатике ОБМ детектировался на более поздних сроках гестационного развития, чем в антилатеральном белом веществе. ОБМ с 10 недели гестации обнаруживался в основном по срединной линии ствола мозга и экспрессировался латеральнее на протяжении второго триместра беременности. Таким образом, авторы заключили, что ОБМ присутствует с 10 недель гестации антилатерально в цервикальной области спинного мозга и срединной линии стволовой области мозга и экспрессируется в рострально-хвостовом направлении от антилатеральной к задней области. Исключением, однако, является область fasciculus gracilis, которая имела большее количество ОБМ-положительных клеток на поясничном уровне, чем в более ростральных областях.
Аналогичные результаты были получены и другими исследователями .
Таким образом, приведенные выше факты свидетельствуют об общем явлении эмбриогенеза человека: начало синтеза нейроспецифических антигенов приходится на 10-18 недели гестации.
Клинико-диагностическое значение ОБМ
Применение ОБМ в качестве маркера деструкции миелина открыло новое направление в нейробиологии, посвященное исследованию значимости этого антигена в диагностике демиелинизирующих заболеваний .
Основная часть этих работ посвящена анализу ОБМ в спинномозговой жидкости (СМЖ) больных рассеянным склерозом . В частности, в работе Thompson и соавт. приводятся результаты определения ОБМ с помощью конкурентного радиоиммунного анализа в пробах СМЖ 221 пациента с рассеянным склерозом. В качестве группы сравнения были выбраны пациенты с различной неврологической патологией (85 человек). При этом повышение концентрации ОБМ было выявлено у 46 из 55 пациентов (84%) с рецидивом рассеянного склероза на протяжении 6 недель и только у 11 из 84 пациентов (13%) с другими неврологическими заболеваниями. При этом имелась четкая корреляция между уровнем ОБМ в СМЖ и тяжестью рецидива (Р Кроме диагностики рассеянного склероза, ряд работ посвящен сравнительному исследованию ОБМ при целом ряде других заболеваний, сопровождающихся процессом демиелинизации. Так, Lamers et. al. методом РИА изучали концентрации ОБМ (наряду с исследованием концентраций NSE и S-100) в СМЖ детей и взрослых с различной неврологической патологией: у больных с рассеянным склерозом (хронически-прогрессивным, рецидивирующе-ремиттирующим и комбинацией обоих типов), при цереброваскулярных нарушениях (с ишемическим и геморрагическим инсультами), у пациентов с деменцией (сосудистой и Альцгеймеровского типа) и при инфекциях ЦНС . Достоверно более высокие уровни ОБМ наблюдались в группе больных с рассеянным склерозом; также достоверное повышение уровней ОБМ отмечалось при цереброваскулярных инсультах и в группах детей с эцефалопатиями.
Несомненно, заслуживают внимания работы, посвященные количественному анализу ОБМ при гидроцефалии. Так, Longatti et. al. исследовали уровень ОБМ у детей первого года жизни, страдающих постгеморрагической гидроцефалией. Авторами было показано значительное увеличение концентраций этого белка в динамике гидроцефалии. Ранее этими же авторами был продемонстрирован феномен более чем 20-кратного увеличения концентрации ОБМ в образцах СМЖ больных с гидроцефалией, полученных при вентрикулярной пункции по сравнению с люмбальной. В то же время, после проведения операции шунтирования отмечалось значительное снижение уровня ОБМ в СМЖ при вентрикулярной пункции. В результате проделанных исследований, авторы делают вывод о том, что анализ ОБМ в СМЖ при гидроцефалии может служить маркером активности развития гидроцефалии, и рекомендуют применение иммунохимического мониторинга ОБМ в динамике и при прогнозировании постгеморрагических гидроцефалий, а также в качестве одного из основополагающих критериев для проведения операции шунтирования. Результаты этой работы нашли экспериментальное подтверждение в исследованиях Del Bigio et. al. , которые выдвинули гипотезу о том, что прогрессирующая гидроцефалия может вызывать задержку процессов миелинизации. Исследователи вызывали гидроцефалию у 3-дневных крысят путем введения каолина в большую цистерну. В результате этой работы было показано, что гидроцефалия способна вызвать задержку процесса миелинизации. В то же время, своевременная операция шунтирования может активировать комплекс процессов компенсаторной миелинизации, однако, в случае длительной экспозиции гидроцефалии, процессы восстановления белого вещества весьма проблематичны.
Интересными, на наш взгляд, являются работы посвященные исследованию концентраций ОБМ в СМЖ и в сыворотке крови больных с опухолями головного мозга. Так, Nakagawa et. al. провели количественное определение ОБМ методом РИА у пациентов с различными видами глиальных опухолей, включая злокачественные. Высокие концентрации ОБМ (выше 4 нг/мл) авторы выявили у пациентов с диссеменацией злокачественных опухолей в мозговую оболочку. В случаях позитивной реакции организма пациентов на химио- или рентгенотерапию (что подтверждалось с помощью КТ, ЯМР, при общем и цитологическом исследовании СМЖ, а также клиническом обследовании), обнаруживалось достоверное снижение концентрации ОБМ в биологических жидкостях, а некоторых случаях даже до уровня нормы. В СМЖ шести пациентов со злокачественными глиомами без метастазирования концентрация ОБМ была значительно выше нормы до начала химиотерапии, а во время лечения наблюдалось дальнейшее повышение уровня ОБМ, однако после окончания химиотерапии концентрация ОБМ снизилась до уровня нормы. У некоторых пациентов со злокачественными глиомами, сопровождающимися метастазированием, авторы отмечали снижение концентраций ОБМ до 4 нг/мл после комплекса проведенных операций по удалению опухолей и химиотерапии (или облучения) в случаях благоприятного клинического течения. Таким образом, был сделан вывод о перспективности применения количественного мониторинга ОБМ для диагностики и прогнозирования течения опухолевых процессов, обусловленных глиомами.
Серия исследований Yamazaki et. al. была посвящена количественному динамическому анализу ОБМ и NSE в сыворотке крови больных с острыми травмами головного мозга. У пациентов в остром периоде после черепномозговой травмы уровни ОБМ в сыворотке крови динамично возрастали с 1,4 нг/мл до 11,3 нг/мл и были достоверно ниже, чем у пациентов с прогностически неблагоприятным исходом (смерть пациентов).
Авторы исследования пришли к выводу, что концентрация ОБМ в сыворотке крови коррелирует со степенью повреждения ткани мозга и определение уровня этого белка, наряду с определением NSE, может служить достоверным лабораторным маркером объема и степени повреждения ткани мозга при острых черепно-мозговых травмах. Аналогичное заключение было сделано ранее и Noseworthy et. al. , которые проводили исследования концентрации ОБМ в сыворотке крови у пациентов в динамике спустя 7 дней, 3 и 6 месяцев после острой черепно-мозговой травмы.
Интересным является цикл работ, посвященных изучению диагностической роли анти-ОБМ-антител в сыворотке крови и СМЖ пациентов с различными неврологическими заболеваниями. При этом, хотя и наибольшее количество исследований посвящено диагностике рассеянного склероза , вряд ли есть основания сделать однозначный вывод о каких-либо перспективах применения анти-ОБМ-антител в диагностике этого заболевания.
Так, группа исследователей под руководством K.G. Warren проводила радиоиммунный анализ анти-ОБМ-антител в СМЖ больных с рассеянным склерозом и другими неврологическими заболеваниями. Авторы выделили два вида антител к ОБМ: «свободные» и «связанные» антитела. При остром рецидиве рассеянного склероза, соотношение концентраций «свободных» и «связанных» антител был выше единицы, в то время, как у пациентов с хроническим вариантом заболевания это соотношение было ниже единицы. По мере наступления ремиссии у пациентов с острым рецидивом, коэффициент постепенно уменьшался и в конечном итоге, антитела на пределе чувствительности метода не обнаруживались. У пациентов с хроническим течением рассеянного склероза выведение антител происходило более медленно и в СМЖ низкие значения антител определялись более длительное время. Кроме изучения динамики элиминации антител в образцах сыворотки крови и СМЖ больных с рассеянным склерозом, авторы выявили анти-ОБМ-антитела в образцах СМЖ больных с острым идиопатическим невритом (преимущественно "свободные" антитела), что дало им основание предположить наличие аутоиммунного компонента в патогенезе острого идиопатического неврита.
Но в тоже время, Brokstad et. al. не выявили анти-ОБМ-антител при иммунохимическом исследовании сыворотки крови и СМЖ пациентов с рассеянным склерозом, а также другими неврологическими заболеваниями.
Приведенные данные, достаточно информативно показывают ценность ОБМ как иммунохимического маркера олигодендроглиоцитов и шванновских клеток при фундаментальных и клинических исследованиях, а также необходимость разработки тест-систем определения данного белка и анти-ОБМ-антител в СМЖ и сыворотке крови.
ЛИТЕРАТУРА
1. Beniac D.R., Wood D.D., Palaniyar N. (2000) J Struct Biol., 129 (1). 80-95;
2. Epand R.M. (1988) In: Neuronal and glial proteins: structure, function and clinical application., 231-265;
3. Facci P., Cavatorta P., Cristofolini L. (2000) Biophys J., 78 (3), 1413-1419;
4. Holton T., Ioerger T.R., Christopher J.A. (2000) Acta Crystallogr. D Biol. Crystallogr., 56 (Pt 6), 722-734;
5. Kleywegt G.J. (1999) Acta Crystallogr. D Biol. Crystallogr., 55 (11), 1878-1884;
6. Kirschner D.A., Ganser A.L., Caspar D.L. (1984). In: Myelin (P. Morell, ed.), 2nd Ed., Plenum: New York, рр. 51-95
7. Pritzker L.B., Joshi S., Harauz G. (2000) Biochemistry, 39 (18), 5382-5388;
8. Riccio P., Fasano A., Borenshtein N. (2000), J. Neurosci. Res., 15, № 59 (4), 513-521;
9. Raine C.S. (1984) In: Myelin (P. Morell, ed.), 2nd Edn., Plenum: New York, pp. 1-50
10. Balendiran G.K., Schnutgen F., Scapin G. (2000), J. Biol. Chem., 275, 27045-2754;
11. Grever W.E., Chiu F.C., Tricoche M. (1996), J. Comp. Neurol., 376 (2), 306-314;
12. Garbay B., Heape A.M., Sargueil F. et al. (2000), Progr. Neurobiol., 61, 267-304;
13. Grever W.E., Weidenheim K.M., Tricoche M. (1997), J Neurosci Res, 47, 332-340;
14. Braun P.E. (1984) In: Myelin (P. Morell, ed.), 2nd Ed., Plenum: New York, 97-113
15. Cuzner M.L., Norton W.T. (1996), Brain Pathol, 6 (3), 231-242;
16. Kirschner D.A., Blaurock A.E. (1991) In: Myelin. Biology and chemistry. (R.E. Martenson, ed.), CRC Press: Boca Raton, Florida, pp. 413 - 448
17. Norton W.T., Cammer W. (1984) Isolation and characterization of myelin. In: Myelin (Ed. Morell P.) Plenum Press, N-Y, pp.147-195;
18. Shults C.W., Whitaker J.N., Wood J.G. (1978), J. Neurochem., 30, 1543-1551;
19. Campagnoni A.T., Pribyl T.M., Campagnoni C.W. et al. (1993), J. Biol. Chem., 268, 4930 – 4938.
20. Kamholz J., De Ferra F., Puckett C. (1986), Proc. Natl. Acad. Sci. USA, 83, 4962 – 4966.
21. Devine-Beach K., Lashgari M.S., Khalili K. (1990), J Biol Chem, 265, 13830-1385;
22. Roach A., Takahashi N., Pravtcheva D. et al (1985), Cell, 42, 149-155;
23. Jacque C., Delassalle A, Raoul M (1983), J Neurochem, 41 (5), 1335-1340;
24. Ohta M., Ohta K., Ma J. (2000), Clin Chem, 46 (9), 1326-1330;
25. Barbarese E., Braun P.E., Carson J.H. (1977), Proc. Natl. Acad. Sci. USA, 74, 3360-3364.
26. Carnegie P.R. (1971), Nature (London), 229, 25 – 28;
27. Roots B.I., Agrawal D., Weir G. et al. (1984), J. Neurochem., 43, 1421-1424;
28. Белик Я.В. (1980), От химической топографии мозга к нейроспецифическим белкам и их функциям. Биохимия животных и человека: Биохимия белков нервной системы, c. 11-22.
29. Терлецкая Я.Т., Белик Я.В., Козулина Е.П. и др. (1987), Молекулярная биология, N 21, 15-26;
30. Gibson B.W., Gilliom R.D., Whitaker J.N. (1984), J. Biol. Chem., 259 (8), 5028-5031.
31. Deibler G.E., Martenson R.E., Krutzsch H.C. et al (1984), J. Neurochem., 43, 100-105.
32. Kira G., Deibler G., Krutzsch H.C. et al. (1985), J. Neurochem., 44, 134-142;
33. Deibler G.E., Krutzsch H.C. and Martenson R.E. (1985), J. Biol. Chem., 260 (1), 472-474;
34. Chou C.-H., Chou F. C.-H., Kowalski T.J. et al. (1978), J. Neurochem., 30, 745 - 750;
35. Day E.D. (1981) Contemp. Top. Mol. Immunol., 8, 1-39.
36. Day E.D., Hashim G.A., Varitek V.A. et al (1981), J. Neuroimmunol., 1 (3), 311-324.
37. Chevalier D., Allen B.G. (2000), Protein Exp. Purif., 18 (2), 229-234;
38. Wong R.W. (1999), Mol. Biotechnol., 13 (1), 17-19.
39. Riederer B., Honegger C.G., Tobler H.J. et al (1984) Gerontology, 30, 234-239;
40. Murray N., Steck A.J. (1984), J. Neurochem., 43, 243-248.
41. Cheifetz S., Moscarello M.A. (1985) Biochemistry, 24, 1909-1914.
42. Brady G.W., Fein D.B., Wood D.D. et al (1985) Biochem. Biophys. Res. Commun., 126, 1161-1165.
43. Wu N.C., Ahmad F. (1984) Biochem. J, 218, 923-932.
44. Deshmukh D.S., Kuizon S., Brockerhoff H. (1984), Life Sci., 34, 259-264.
45. Saltiel A.R., Fox J.A., Sherline P. (1987), Biochem. J., 214, 759-763.
46. Kishimoto A., Nishiyama K., Nakanishi H. et al (1985), J. Biol. Chem., 260, 12492-12499.
47. Wise B.C., Glass D.B., Chou C.H. et al (1982), J. Biol. Chem., 257, 8489-8495.
48. Vartanian T., Szuchet S., Dawson G. et al (1986), Science, 234, 1395-1398.
49. Chan K.-F. J. (1987), J. Biol. Chem., 262, 2415-2422.
50. Ulmer J.B., Braun P.E. (1986), Develop. Biol., 117, 502-510.
51. Amur S.G., Shanker G., Pieringer R.A. (1984) J. Neurochem., 43, 494-498.
52. Sorg B., Agrawal D., Agrawal H. et al (1986) J. Neurochem., 46, 379-387.
53. Kim S., Tuck M., Kim M. (1986) J. Neurosci. Res., 16, 357-365.
54. Molineaux S.M., Engh H., De Ferra F. et al (1986) Proc. Natl. Acad. Sci. USA, 83, 7542-7546.
55. Shine H.D., Readhead C., Popko B. (1992) J. Neurochem. 58 (1), 342-349.
56. Kirschner D.A., Ganser A.L. (1980) Nature, 283, 207-210.
57. Martini R., Zielasek J., Toyka K. et al (1995) Nature Genet., 11, 281-286.
58. Williams K.R., Williams N.D., Konigsberg W. et al. (1986) J. Neurosci. Res., 15, 137-145.
59. Chiu K.C., Westall F., Smith R.A. (1986) Biochem. Biophys. Res. Commun., 136, 426-432.
60. Deibler G.E., Burlin T.V., Stone A.L. (1995) J. Neurosci. Res., 15, 819-827.
61. Fraser P.E., Deber C.M. (1985) Biochemistry, №13, 4593-4598;
62. Kobayashi N., Freund S.M., Chatellier J. et al (1999) J. Mol. Biol., 292 (1), 181-190;
63. Smith R. (1985) FEBS Lett, 183, 331-334;
64. Martenson R.E., Mendz G.L., Moore W.J. (1985) Biochem. Biophys. Res. Commun., 131, 1269-1276.
65. Riccio V. , Tsugita A., Bobba A. et al (1985) Biochem. Biophys. Res. Commun., 127, 484-492.
66. Moscarello M.A., Chia L.S., Leighton D. et al (1985) J. Neurochem. 45 (2), 415-421.
67. Moskaitis J.E., Campagnoni A.T. (1986), Neurochem. Res., 11, 299-315.
68. Boggs J.M., Moscarello M.A. (1984) Can J. Biochem. Cell. Biol., 62, 11-18.
69. Boggs J.M., Moscarello M.A., Papahadjopoulos D. (1982) In: Lipids and protein interactions (Eds. P.Jost and O.H. Griffith), vol. 2, pp.27-51;
70. Boggs J.M., Rangaraj G., Koshy K.M. (1999) J. Neurosci. Res., 57, 529-535;
71. Mullin B.R., Decandis F.X., Montanaro A.J. et al (1981) Brain Res, 222, 218-221.
72. Brady G.W., Murthy N.S., Fein D.B. et al (1981) Biophys. J., 34, 345-350.
73. Sedzik J., Blaurock A.E., Hoechli M. (1984) J. Mol. Biol., 174, 385-409.
74. Smith R. (1977) Biochim. Biophys. Acta, 470, 170-184.
75. Yohg P.R., Vacante D.A., Synder W.R. (1982) J. Am. Chem. Soc., 104, 7287-7291.
76. Fu S.C., Mozzi R., Krakowka S. et al (1980), Acta Neuropathol. (Berl), 49 (1), 13-18.
77. Walker A.G., Rumsby M.G. (1985) Neurochem. Int., 7, 441-447.
78. Sridhara S., Epand R.M., Moscarello M.A. (1984) Neurochem. Res., 9, 241-248.
79. Weidenheim K.M., Epshteyn I., Rashbaum W.K. (1993) J. Neurocytol, 22 (7), 507-516
80. Weidenheim K.M., Bodhireddy S.R., Rashbaum W.K. (1996) J. Neuropathol. Exp. Neurol., 55 (6), 734-745.
81. Bodhireddy S.R., Lyman W.D., Rashbaum W.K. (1994) J. Neuropathol. Exp. Neurol., 53 (2), 144-149.
82. Zecevic N., Andjelkovic A., Matthieu J. (1998) Brain Res. Dev. Brain. Res., 14, 97-108.
83. Хохлов А.П., Савченко Ю.Н. (1990) Миелинопатии и демиелинизирующие заболевания, Медицина.
84. Annunziata P., Pluchino S., Martino T. (1997) J. Neuroimmunol., 77 128-133.
85. Brokstad K.A., Page M., Nyland H. (1994) Acta Neurol. Scand., 89 (6), 407-411.
86. Fesenmeier J.T., Whitaker J.N., Herman P.K. (1991) J. Neuroimmunol., 34 (1), 77-80.
87. Lamers K.J., van Engelen B.G., Gabreels F.J. (1995) Acta. Neurol. Scand., 92 (3), 247-251.
88. Lamers K.J., de Reus H.P., Jongen P.J. (1998) Mult. Scler., 4 (3), 124-126.
89. Longatti P.L., Guida F., Agostini S. (1994) Childs Nerv. Syst., 10 (2), 96-98.
90. Maatta J.A., Coffey E.T., Hermonen J.A. et al. (1997) Biochem. Biophys. Res. Commun., 238 (2), 498-502.
91. Massaro A.R., Michetti F., Laudisio A. (1985) Ital. J. Neurol. Sci., 6 (1), 53-56.
92. Melse J., Noppe M., Crols R. (1983) Acta Neurol. Belg., 83 (1), 17-22.
93. Soderstrom M., Link H., Xu Z. (1993) Neurology, 43 (6), 1215-1222.
94. Thompson A.J., Brazil J., Feighery C. (1985) Acta Neurol. Scand., 72 (6), 577-583.
95. Wood D.D., Bilbao J.M., O"Connors P. (1996) Ann Neurol., 40 (1), 18-24.
96. Warren K., Catz I. Johnson E. (1994) Ann Neurol., 35 (3), 280-289.
97. Yamazaki Y., Yada K., Morii S. et al (1995) Surg. Neurol., 43 (3), 267-270.
98. Barkhof F., Frequin S.T., Hommes O.R. (1992) Neurology, 42 (1), 63-67.
99. Warren K.G., Catz I. (1993) J. Neurol Sci, 115 (2), 169-176.
100. Sellebjerg F., Christiansen M., Nielsen P.M. (1998) Mult. Scler., 4 (6), 475-479.
101. Garcia-Alix A., Cabanas F., Pellicer A. (1994) Pediatrics, 93 (2), 234-240.
102. van Engelen B.G., Lamers K.J., Gabreels F.J. (1992) Clin. Chem., 38 (6), 813-816.
103. Del Bigio M.R., Kanfer J.N., Zhang Y.W. (1997) J. Neuropathol. Exp. Neurol., 56 (9), 1053-1066.
104. Matias-Guiu J., Martinez-Vazquez J., Ruibal A. (1986) Acta Neurol. Scand., 73 (5), 461-465.
105. Seeldrayers P.A., Hoyle N.R., Thomas D.G. (1984) J. Neurooncol., 2 (2), 141-145.
106. Nakagawa H., Yamada M., Kanayama T. (1994) Neurosurgery, 34 (5), 825-833.
107. Noseworthy T.W., Anderson B.J., Noseworthy A.F. (1985) Crit. Care Med., 13 (9), 743-746.
108. Sellebjerg F., Christiansen M., Garred P. (1998) Mult Scler, 4 (3), 127-131.
109. Кучинскене Д.И. (1992), Клиническое значение определения антител к основному белку миелина у больных рассеянным склерозом, ретробульбарным невритом и здоровых родственников., Автореф. дисс… канд. мед. наук.
110. Sellebjerg F., Frederiksen J.L., Olsson T. (1994) Scand. J. Immunol., 39 (6), 575-580.
111. Бойко А.Н., Фаворова О.О. (1995) Мол. биол., 29, № 4, 727-749.
112. Гусев Е.И., Демина Т.Л., Бойко А.Н. (1997) Рассеянный склероз., c. 463.
113. Warren K.G., Catz I. (1993) J. Neuroimmunol., 43 (1-2), 87-96.
114. Warren K.G., Catz I. (1994) J. Neurol Sci, 121 (1), 66-73.
115. Warren K.G., Catz I. (1995) J. Neurol Sci, 133 (1-2), 85-94.
116. Warren K.G., Catz I. (1999) Eur. Neurol., 42 (2), 95-104.

